Hidrogênio nascido da reação entre rocha e água e carbono inorgânico em abundância permitem que uma arqueia produtora de metano viva duas unidades e meia de pH além do seu limite conhecido
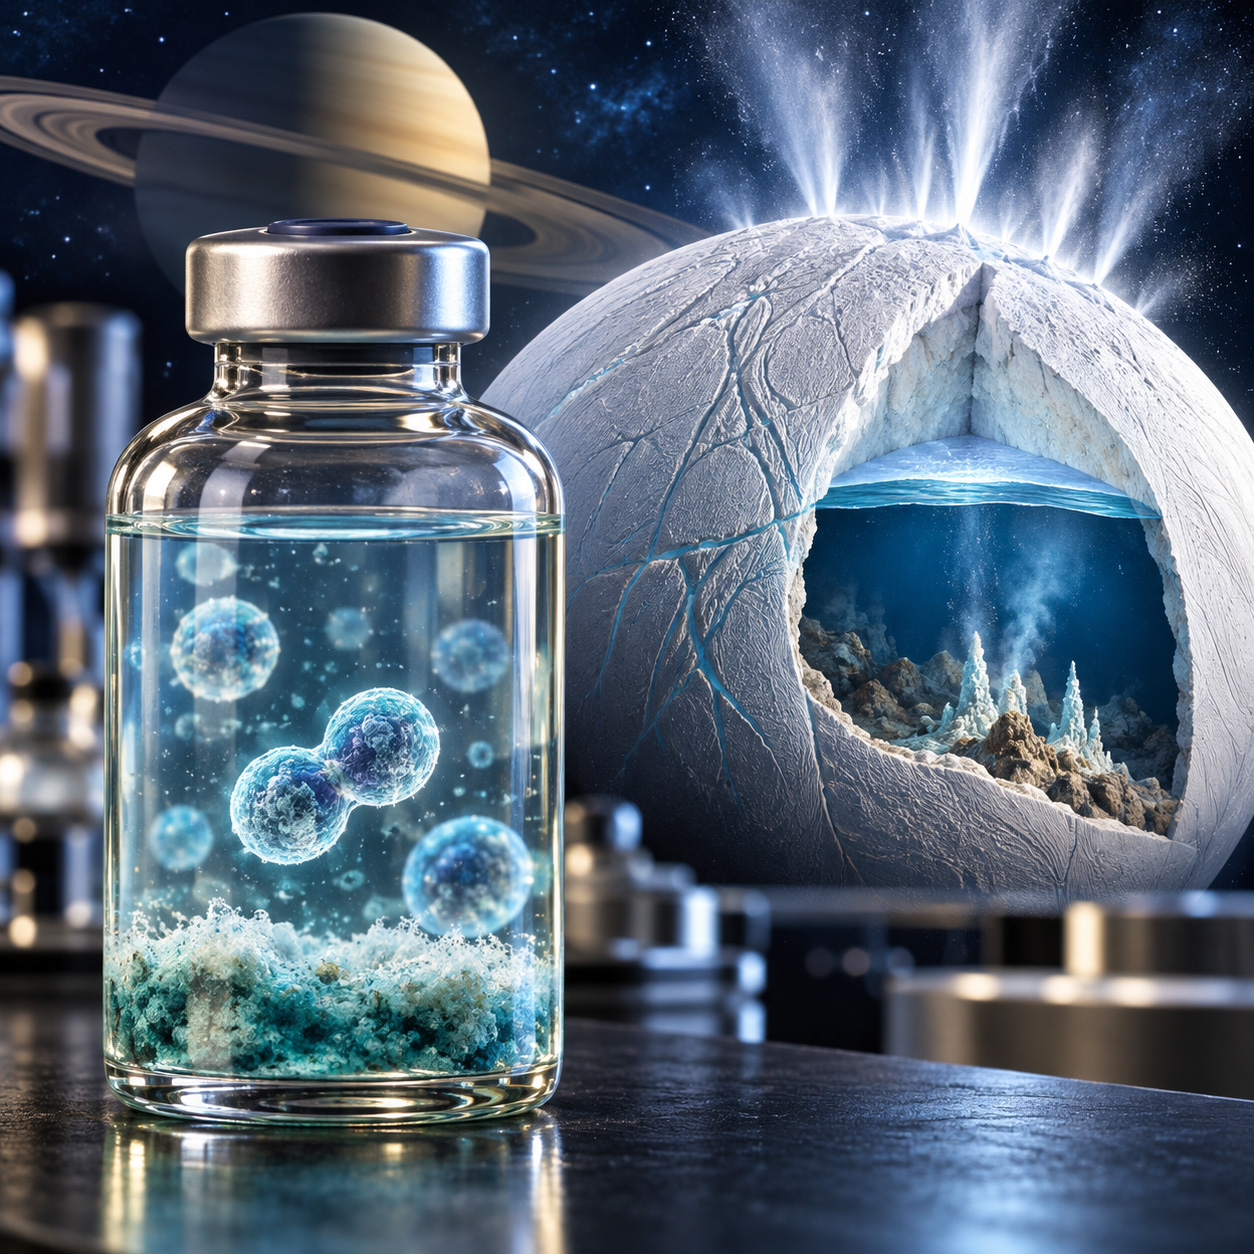
Dentro de uma câmara selada em Munique, onde o oxigênio foi expulso até sobrar menos de uma parte por milhão, um frasco de vidro com tampa metálica guardava algo que nenhuma sonda jamais tocou: um pedaço do fundo do oceano de Encélado. Não era, claro, material trazido da lua de Saturno. Era uma reconstrução meticulosa, montada com pó de rocha de composição condrítica e uma salmoura carregada de carbonato, aquecida a 65 °C e mantida num pH tão alcalino quanto o de uma solução de barrilha. Em 48 horas, um precipitado azul-esverdeado se depositou no fundo. E, suspensos nessa lama mineral, micróbios terrestres que nunca deveriam sobreviver ali não apenas resistiram: cresceram, respiraram hidrogênio e exalaram metano.

O experimento, descrito em 25 de setembro de 2026 na revista Science Advances por uma equipe liderada por Vanessa Helmbrecht e William D. Orsi, da Universidade Ludwig-Maximilians de Munique, ataca uma das perguntas mais incômodas da astrobiologia contemporânea. Sabemos que o oceano escondido sob o gelo de Encélado tem hidrogênio, tem carbono, tem calor e tem água em contato com rocha. Falta saber se a química desse oceano, de alcalinidade extrema, permite que um organismo use esses ingredientes para viver. Os resultados indicam que sim, ao menos para um tipo de arqueia produtora de metano, e ampliam em duas unidades e meia de pH o território que a vida microbiana conhecida é capaz de ocupar.
A composição da equipe diz muito sobre o tipo de pergunta que o artigo tenta responder. Ao lado dos geobiólogos de Munique estão Frank Postberg e Nozair Khawaja, da Universidade Livre de Berlim, cientistas planetários que estão na linha de frente das análises dos grãos de gelo coletados pela sonda Cassini; Frieder Klein, da Instituição Oceanográfica de Woods Hole, especialista na formação de brucita em serpentinitos do fundo do mar; e Dina Grohmann e Robert Reichelt, do Centro de Arqueias da Universidade de Regensburg, que dominam a biologia molecular desses microrganismos. Geoquímica planetária, mineralogia hidrotermal e microbiologia de arqueias convergiram num único frasco, e é dessa convergência que vem a força do resultado.
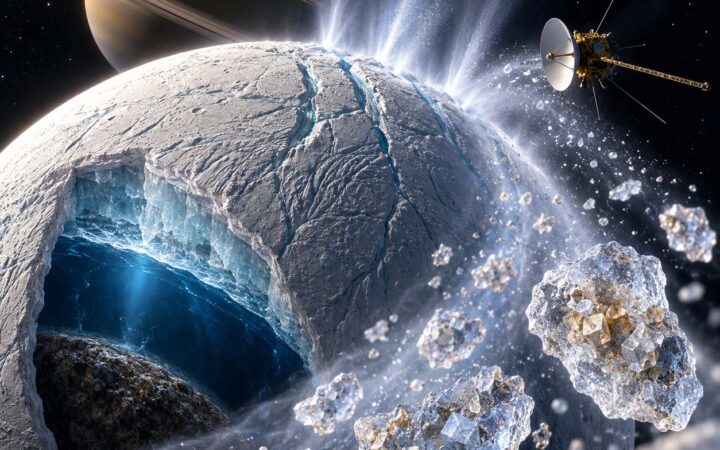
Encélado é uma bola de gelo de cerca de 500 quilômetros de diâmetro, pequena o bastante para caber dentro do estado de São Paulo, e por muito tempo pareceu apenas mais um satélite congelado nos arredores de Saturno. A sonda Cassini mudou essa percepção em 2005, ao fotografar jatos de vapor e partículas de gelo que brotam de fraturas na região polar sul, as chamadas listras de tigre. Esses gêiseres alimentam o anel E de Saturno e, nos anos seguintes, viraram um laboratório gratuito: ao atravessá-los, a Cassini pôde analisar diretamente amostras de um oceano extraterrestre sem precisar pousar, perfurar ou derreter um único centímetro de gelo.
As descobertas vieram em camadas. Grãos de gelo ricos em sais de sódio mostraram que a água do oceano toca o núcleo rochoso. Nanopartículas de sílica indicaram reações hidrotermais em temperaturas de pelo menos 90 °C. Em outubro de 2015, numa passagem rasante a apenas 49 quilômetros da superfície, o espectrômetro de massa da sonda detectou hidrogênio molecular na pluma, assinatura de que a rocha quente está sendo alterada pela água. Em 2023, uma equipe liderada por Postberg identificou fosfatos nos grãos de gelo, em concentrações pelo menos cem vezes superiores às dos oceanos terrestres. O retrato que emergiu é o de um oceano de soda: alcalino, carregado de carbonato dissolvido e quimicamente ativo.
Quão alcalino? As estimativas variam de pH 8, pouco acima do da água do mar terrestre, a 11,6, segundo uma análise de 2025 baseada justamente na química dos fosfatos. Para efeito de comparação, cada unidade de pH corresponde a uma redução de dez vezes na concentração de íons de hidrogênio, de modo que uma água em pH 11 tem mil vezes menos desses íons do que o mar da Terra, em pH 8. Essa alcalinidade cria um paradoxo que os modelos termodinâmicos vinham deixando em aberto. Do ponto de vista energético, combinar o hidrogênio da pluma com dióxido de carbono para produzir metano é um negócio lucrativo para um micróbio. Do ponto de vista bioquímico, porém, o dióxido de carbono quase não existe num oceano assim.
O carbono inorgânico dissolvido na água muda de roupa conforme o pH. Em meio ácido, ele circula como gás carbônico dissolvido, a mesma molécula que faz a água com gás borbulhar. Perto do pH neutro, predomina o bicarbonato, o íon do fermento químico de cozinha. Acima de pH 9, quase tudo vira carbonato, o íon da barrilha. Para um metanogênio, isso faz toda a diferença: a única forma que ele consegue puxar diretamente para dentro da célula, atravessando a membrana sem ajuda, é o gás carbônico. Bicarbonato e carbonato ficam do lado de fora, como latas lacradas numa despensa farta. Encélado, com dezenas de milimols de carbono inorgânico por quilo de água, é uma despensa cheia. A questão era saber se alguém conseguiria abrir as latas.
A Terra oferece pistas de que a resposta pode ser positiva. Lagos de soda como o Mono, na Califórnia, e o Magadi, no Quênia, mantêm pH em torno de 10 ou acima e ainda assim fervilham de microrganismos alcalifílicos, entre eles arqueias produtoras de metano adaptadas a viver cercadas de carbonato. Esses ecossistemas, porém, recebem matéria orgânica de fora, trazida por rios, algas e aves, e boa parte de seus metanogênios se alimenta de compostos orgânicos já prontos. O fundo do oceano de Encélado não teria esse luxo. Lá, qualquer organismo precisaria construir todas as suas moléculas a partir do carbono inorgânico e da energia química da rocha, sem receber nada de uma superfície iluminada. É um teste muito mais severo, e foi esse o teste que a equipe decidiu aplicar.
Os candidatos naturais a esse papel são as arqueias metanogênicas, microrganismos que não pertencem nem às bactérias nem aos eucariotos e que há bilhões de anos ganham a vida reduzindo gás carbônico com hidrogênio. Elas toleram temperaturas de quase zero a 110 °C e já foram encontradas crescendo em pH 10,2. Experimentos anteriores com condições parecidas com as de Encélado, incluindo um estudo de 2018 que submeteu uma arqueia a pressões altas e a inibidores detectados na pluma, confirmaram a produção de metano, mas todos foram feitos em meio ácido, em torno de pH 5, onde o gás carbônico é abundante. Ninguém havia testado o cenário realmente alcalino, com o carbono trancado na forma de carbonato, e com o hidrogênio vindo não de um cilindro, mas da própria reação entre rocha e água.
A escolha do organismo-modelo recaiu sobre Methanothermococcus okinawensis, uma arqueia isolada de uma fonte hidrotermal submarina na cordilheira Iheya, na fossa de Okinawa, no sudoeste do arquipélago japonês. Ela aprecia calor e, segundo a descrição original de 2002, cresce até um limite de pH 8,5. Dois traços a tornavam atraente para o teste. Primeiro, M. okinawensis pertence ao grupo de metanogênios que não possuem citocromos, proteínas de transporte de elétrons que, quando presentes, exigem concentrações mais altas de hidrogênio. Sem elas, o micróbio se contenta com níveis de hidrogênio de apenas 1 a 10 pascals. Segundo, esses organismos costumam gerar energia usando gradientes de íons de sódio em vez de prótons, um detalhe crucial num ambiente onde os prótons são justamente o que falta.
Para recriar o fundo do oceano, a equipe montou o que chama de simulante de Encélado, uma combinação de dois componentes. O primeiro é uma solução oceânica sintética preparada em pH entre 10 e 12 e contendo 100 milimols de carbono inorgânico dissolvido por quilograma, o extremo superior das estimativas disponíveis para a lua, que vão de 20 a 100. O segundo é um pó de rocha que imita a composição condrítica proposta para o núcleo de Encélado, feito de óxidos de silício, magnésio, ferro e cálcio pulverizados, para representar os sedimentos hidrotermais que se acumulariam na base de uma chaminé no fundo do mar. A faixa de pH escolhida é a que modelos geoquímicos apontam como termodinamicamente favorável à metanogênese nesse oceano.
Tudo foi incubado a 65 °C, temperatura de um café recém-servido e também o ponto de conforto térmico da arqueia, durante 48 horas, dentro de uma câmara anóxica com atmosfera de nitrogênio e menos de uma parte por milhão de oxigênio. O ferro foi acrescentado na forma de cloreto ferroso, a 60 milimols por litro, uma concentração deliberadamente alta, muito acima da faixa de nanomols a micromols prevista para os fluidos hidrotermais de Encélado. A razão é prática: reações entre minerais e água que no mundo real se arrastam por escalas geológicas de tempo precisavam avançar o suficiente para serem medidas em dois dias de bancada. O pH, verificado no início e no fim, não variou mais do que meia unidade.
O estudo foi organizado em cinco conjuntos de experimentos, cada um respondendo a uma pergunta diferente. O primeiro identificou os minerais que se formam no simulante. O segundo mediu quanto hidrogênio a reação entre rocha e água produz sem nenhum micróbio presente. O terceiro usou carbono marcado isotopicamente para rastrear o metano produzido pelas arqueias. O quarto acompanhou o crescimento das células ao longo de 48 horas. O quinto sequenciou o RNA dos organismos para descobrir quais genes estavam sendo acionados em cada condição. Todos os dados de sequenciamento foram depositados em repositório público, no arquivo de leituras curtas do NCBI, sob o identificador de bioprojeto PRJNA1157004, de modo que qualquer grupo possa refazer as análises.
Ao fim do período de incubação, um precipitado azul-esverdeado cobria o fundo dos frascos, e sua identidade mineral foi destrinchada por espectroscopia Raman, microscopia eletrônica de varredura e análise térmica. Quatro fases apareceram: brucita ferrosa, um hidróxido de magnésio em que parte do magnésio foi substituída por ferro; iowaíta, um hidróxido duplo em camadas contendo ferro, cloro e água; e dois polimorfos de carbonato de cálcio, a calcita e a aragonita. Os sinais são inconfundíveis para quem lê espectros: bandas em 276, 442 e 3645 centímetros recíprocos denunciam a brucita, e o deslocamento dessa última banda em relação aos 3650 da brucita puramente magnesiana revela a presença do ferro na estrutura. A iowaíta se anuncia perto de 526, os carbonatos em 1085, com a calcita e a aragonita separadas pelas bandas em 712 e 702.

A análise de raios X por energia dispersiva fechou a conta da composição: cerca de 89% de magnésio e 11% de ferro em mols, o que coloca a fração de ferro na brucita entre 0,097 e 0,128, dentro da faixa observada em brucitas ferrosas naturais, que vai de 0,05 a 0,35. Os ensaios térmicos registraram duas perdas de massa, uma abaixo de 200 °C e outra entre 345 e 360 °C, correspondentes à desidroxilação do mineral. Esses detalhes importam porque a brucita ferrosa não é um coadjuvante qualquer. Ela é um dos produtos secundários típicos da serpentinização em baixa temperatura, o processo pelo qual a água hidrata minerais ricos em magnésio e ferro, como a olivina, e no caminho libera hidrogênio. Encontrá-la no frasco é sinal de que o frasco estava, de fato, serpentinizando.
E o hidrogênio apareceu. Em todos os simulantes, a equipe mediu concentrações entre 281 e 166 micromols por litro, com margens de erro de 5 a 8, decrescendo à medida que o pH subia de 9 para 11. É uma quantidade generosa, bem acima do mínimo que metanogênios sem citocromos precisam para crescer. Nos frascos de controle sem cloreto ferroso, nada de hidrogênio foi detectado, o que amarra a produção do gás ao ferro em estado reduzido e descarta a hipótese de contaminação orgânica dos reagentes. O mecanismo é o mesmo que opera nos sistemas hidrotermais terrestres: a água oxida o ferro ferroso presente na brucita, convertendo-o em ferro férrico, e os elétrons liberados nessa troca acabam reduzindo prótons da água a hidrogênio molecular.

Os autores propõem uma reação específica para esse passo, em que oito unidades de brucita rica em ferro reagem com água e íons cloreto para formar uma unidade de iowaíta, liberando uma molécula de hidrogênio e dois íons hidroxila. Há uma consequência elegante embutida nessa equação. Quando um micróbio consome o hidrogênio produzido, ele remove um dos produtos da reação e, pelas leis do equilíbrio químico, puxa a transformação adiante, estimulando a brucita a gerar ainda mais gás. Rocha e célula entram numa espécie de parceria: a primeira fornece o combustível, a segunda, ao consumi-lo, mantém a fábrica funcionando. É exatamente o tipo de acoplamento geobiológico que se imagina sustentar comunidades microbianas em sistemas serpentinizantes da Terra.

Para servir de referência, as arqueias também foram cultivadas num meio laboratorial clássico para metanogênios, conhecido pela sigla MMC, com o espaço acima do líquido pressurizado com uma mistura de hidrogênio e gás carbônico. Ali o hidrogênio dissolvido variou de 323 a 605 micromols por litro, duas a três vezes mais do que nos simulantes. Os pesquisadores reconhecem que as taxas de produção medidas no experimento provavelmente superam as de Encélado, por causa da dose elevada de ferro. Ainda assim, as concentrações finais, na casa dos micromols, caem dentro da faixa prevista para o oceano de soda da lua e dentro do intervalo, de nanomols a milimols, estimado para seus fluidos hidrotermais. O cenário é exagerado na velocidade, não na química.
Com o combustível garantido, a pergunta passou a ser se as arqueias o estavam usando. A primeira pista veio ao microscópio de fluorescência: sob luz ultravioleta, células intactas de M. okinawensis brilhavam em azul no meio da lama mineral. Esse brilho vem da coenzima F420, uma molécula característica do metabolismo dos metanogênios que só fluoresce quando a célula está viva e ativa. A segunda pista estava nos números. Nos frascos inoculados, a concentração de hidrogênio ficou de 31% a 38% abaixo da registrada nos controles abióticos, exatamente o que se espera quando alguém está consumindo o gás à medida que ele é produzido.

Para provar que o metano produzido vinha do metabolismo e não de alguma reação puramente mineral, a equipe recorreu a um truque de marcação isotópica. Parte do bicarbonato adicionado ao sistema continha carbono-13, um isótopo estável e raro, que compõe pouco mais de 1% do carbono natural. Se as arqueias estivessem fixando o carbono inorgânico do meio, o metano que elas exalassem carregaria uma proporção de carbono-13 muito acima dessa abundância natural. Foi o que aconteceu. Nos simulantes, a fração de carbono-13 no metano variou de 10,9% em pH 9 a 2,1% em pH 11, sempre acima da linha de base, e a taxa de produção acompanhou de perto a disponibilidade de hidrogênio, com um coeficiente de determinação de 0,81.

No meio laboratorial, o quadro foi mais pobre. A marcação no metano caiu de 4,2% para 1,7% entre pH 9 e 10,5 e desapareceu por completo em pH 11, mesmo com o dobro ou o triplo de hidrogênio disponível. Isso configura um paradoxo que atravessa todo o estudo: as arqueias no meio de cultura rico, com mais hidrogênio, mais nutrientes e mais metais-traço, produziram menos metano e cresceram menos do que as arqueias enterradas em pó de rocha e salmoura. A explicação, que os cálculos geoquímicos confirmariam adiante, está no carbono. Entre pH 9 e 11, o gás carbônico dissolvido no meio MMC varia de um milionésimo a um décimo de bilionésimo de mol por quilograma, enquanto nos simulantes ele permanece de dez a cem vezes mais abundante, por causa da carga muito maior de carbono inorgânico.
Os dados de crescimento tornam a história concreta. No meio MMC em pH 6,5, sua zona de conforto, M. okinawensis cresceu exponencialmente, a uma taxa de 0,12 por hora, e ultrapassou dez milhões de células por mililitro em 48 horas. Bastou elevar o pH para 9 para que o crescimento virasse uma linha reta e tímida, estacionando em cem mil células por mililitro, cem vezes menos. Em pH 10, a redução chegou a dez mil vezes. Em pH 11, nada: nenhuma divisão celular detectável. Esse é o comportamento esperado de um organismo descrito como incapaz de viver acima de pH 8,5, e teria encerrado a discussão se o experimento tivesse parado aí.
Nos simulantes de Encélado, as mesmas células escreveram outra história. Em pH 9, a população chegou a 530 mil células por mililitro, duas vezes e meia mais do que no meio laboratorial. Em pH 10, atingiu 240 mil, cem vezes mais do que no controle. Em pH 11, onde o meio MMC não sustentou crescimento algum, os frascos com pó de rocha abrigaram 140 mil células por mililitro ao fim de dois dias. Com isso, o limite conhecido de pH para a espécie saltou de 8,5 para 11, uma diferença que, em escala logarítmica, equivale a mais de trezentas vezes menos íons de hidrogênio disponíveis. Os autores observam que o achado se alinha a trabalhos recentes mostrando metanogênese autotrófica em condições alcalinas entre pH 7 e 12.


O que a rocha e a salmoura ofereceram que o meio de cultura não tinha? Não foi hidrogênio, que era mais abundante no MMC. Não foram nutrientes nem metais-traço, que sequer foram adicionados ao simulante e chegaram apenas no mililitro de meio transferido junto com o inóculo, diluídos vinte vezes. Foi carbono. O simulante continha dez vezes mais carbono inorgânico dissolvido do que o meio laboratorial, e os cálculos feitos com o programa SpecE8, do pacote Geochemist’s Workbench, mostraram que isso se traduz em concentrações de gás carbônico dissolvido entre 7,5 × 10⁻⁵ e 3,6 × 10⁻⁸ mol por quilograma nos simulantes, contra 4,7 × 10⁻⁶ a 8,4 × 10⁻¹⁰ no MMC, ao longo da mesma faixa de pH. Quanto mais gás carbônico disponível, mais células novas se formaram.
A relação aparece com clareza quando se coloca o número de células novas formadas lado a lado com a ordem de grandeza do gás carbônico em cada condição. Em pH 9, o meio MMC, com um milionésimo de mol de gás carbônico por quilo, gerou da ordem de cem mil células, e o simulante, com dez vezes mais, meio milhão. Em pH 10 e 11, a vantagem do simulante se abre para uma ou duas ordens de grandeza. O carbono, e não a energia, era o gargalo. Essa inversão de prioridades é contraintuitiva para quem pensa em habitabilidade apenas em termos de fontes de energia, e ela recoloca o carbono inorgânico dissolvido no centro da discussão sobre Encélado.

Saber que as células cresceram é uma coisa; saber como elas conseguiram é outra. Para isso, a equipe sequenciou o RNA das arqueias em cada condição, a uma profundidade mediana de 71,5 milhões de pares de leituras por amostra, e comparou quais genes estavam mais ativos no simulante do que no meio MMC. A transcriptômica funciona como um registro das ordens de serviço que a célula emite: um gene mais transcrito indica uma proteína sendo fabricada em maior quantidade. Em pH 9, 10 e 11, respectivamente 170, 82 e 255 genes estavam significativamente mais expressos no simulante do que no controle. No sentido inverso, o meio MMC induziu 101, 35 e apenas 3 genes a mais. Quanto mais alcalino o ambiente, mais a rocha e a salmoura mobilizavam a maquinaria celular.

Classificados por função, uma fatia expressiva dos genes acionados no simulante em pH alcalino pertence à categoria de produção e conversão de energia, segundo o banco de dados de grupos ortólogos de arqueias. A resposta fisiológica, portanto, não era difusa: o organismo redirecionava recursos para gerar energia e capturar carbono. E a assinatura mais forte veio de uma via metabólica antiga, batizada em homenagem a dois bioquímicos, Harland Wood e Lars Ljungdahl, e com importância fundadora na história da vida: a via de Wood-Ljungdahl, também chamada de via redutora da acetil-coenzima A.
Essa via é a forma como metanogênios como M. okinawensis fixam carbono. Em vez de usar o ciclo de Calvin das plantas, eles reduzem o gás carbônico com hidrogênio em dois ramos paralelos. Num deles, o carbono é reduzido passo a passo até virar um grupo metil; no outro, uma segunda molécula de gás carbônico é convertida em monóxido de carbono. Uma enzima gigante, a monóxido de carbono desidrogenase/acetil-CoA sintase, junta os dois pedaços numa acetil-coenzima A, o tijolo a partir do qual a célula constrói lipídios, proteínas e tudo o mais. O ramo do metil é compartilhado com a própria metanogênese: parte dos grupos metil segue para virar metano, liberando a energia que paga a conta, e parte vira biomassa. Muitos bioquímicos consideram essa a mais antiga rota de fixação de carbono do planeta.
Em pH 11 no simulante, a condição mais hostil de todas, dezoito genes ligados à metanogênese estavam mais ativos do que no controle, o maior número de qualquer condição. Entre eles, as subunidades da monóxido de carbono desidrogenase/acetil-CoA sintase, identificadas como cdhA, cdhB e cdhD, responsáveis por produzir a acetil-coenzima A para o crescimento. Também subiram as subunidades da formilmetanofurano desidrogenase, a enzima que dá o primeiro passo da redução do gás carbônico, as subunidades da formato desidrogenase e um componente do sistema da metil-coenzima M redutase, a enzima que fecha o ciclo liberando metano. Lido em conjunto, o padrão descreve uma célula que, diante da escassez extrema de gás carbônico, superexpressa justamente o aparato que o captura e o transforma. É o abridor de latas.

Havia uma hipótese alternativa óbvia que não se confirmou. Muitos autótrofos que vivem em pH neutro ou alcalino usam a anidrase carbônica, uma enzima que converte bicarbonato em gás carbônico dentro ou perto da célula. O genoma de M. okinawensis codifica várias anidrases carbônicas, e elas estavam expressas em algumas condições alcalinas, mas sem aumento significativo em relação ao controle. O que subiu, e muito, em pH 11 foi um gene identificado como Metok_0190, que codifica o domínio de ligação de um transportador do tipo ABC para nitrato ou bicarbonato. Transportadores ABC são bombas moleculares movidas a ATP que puxam moléculas específicas para dentro da célula. Ao que parece, a arqueia estava investindo em capturar o bicarbonato diretamente, em vez de esperar que ele se convertesse em gás do lado de fora.
O segundo mecanismo proposto dispensa enzimas e se apoia num princípio de química do ensino médio, o de Le Chatelier. Num sistema em equilíbrio, qualquer perturbação provoca uma resposta que a compensa. Se as células retiram continuamente o pouco gás carbônico presente na solução, o equilíbrio entre as formas do carbono se desloca para repor o que foi consumido, convertendo bicarbonato em novo gás carbônico. A despensa, por assim dizer, tem uma lata que se reabre sozinha sempre que alguém esvazia a anterior. Com um estoque de 100 milimols de carbono inorgânico por quilo, esse reabastecimento pode sustentar um fluxo pequeno, porém constante, de carbono utilizável. Os autores também lembram que o ácido carbônico, forma intermediária e neutra, pode atravessar a membrana livremente e ser aproveitado dentro da célula.
Resolver o carbono não bastava, porque o pH alto cria um segundo problema, energético. Quase todas as células geram ATP, sua moeda de energia, bombeando prótons para fora da membrana e deixando-os voltar através de uma turbina molecular, a ATP sintase. Em pH 11, a concentração de prótons do lado de fora é tão baixa que manter essa diferença de potencial se torna caro. Os dados de expressão sugerem que M. okinawensis contornou o obstáculo trocando a moeda: genes de antiportadores sódio-próton e de uma descarboxilase que expulsa sódio da célula estavam mais ativos, assim como os de ATP sintases arqueanas capazes de usar tanto sódio quanto prótons. Na prática, a arqueia parece ter passado a mover sua turbina com íons de sódio, abundantes num oceano salgado, em vez de depender dos prótons escassos.
A conclusão dos autores é direta: a geoquímica de um oceano como o de Encélado fornece os dois substratos de que um metanogênio quimiolitoautotrófico precisa, hidrogênio abiótico vindo da reação entre rocha e água e carbono inorgânico em alta concentração, e a combinação dos dois permite crescimento em pH de 9 a 11, muito além da faixa natural do organismo na Terra. A janela de habitabilidade do oceano de Encélado, se os resultados se sustentarem, é mais larga do que se supunha. Não porque a lua tenha ficado mais amena, mas porque a vida microbiana se mostrou mais engenhosa diante da alcalinidade do que os manuais previam.
Esse resultado não surge no vácuo. Na Terra, ambientes hiperalcalinos criados pela serpentinização já são conhecidos por abrigar metanogênios e acetógenos, organismos que fixam carbono pela mesma via de Wood-Ljungdahl. O caso mais célebre é o campo hidrotermal Lost City, no meio do Atlântico, descoberto em 2000, onde chaminés de carbonato de até 60 metros de altura exalam fluidos a pH entre 9 e 11, ricos em hidrogênio e metano, a temperaturas de 40 a 90 °C. Fontes serpentinizantes no maciço de Voltri, na Itália, e nos ofiolitos de Omã também hospedam comunidades metanogênicas ativas. Esses lugares funcionam como modelos terrestres do que pode existir no fundo do oceano de Encélado, e o novo estudo os conecta ao satélite com dados de laboratório.
Para o grupo de Orsi, o trabalho é também a continuação de uma linha de pesquisa sobre as origens do metabolismo. Em 2025, a mesma equipe de Munique e Regensburg publicou um experimento em que uma geoquímica simulada da Terra primitiva, com um jardim químico de sulfeto de ferro, alimentou o mesmo tipo de metabolismo dependente de hidrogênio. A lógica é a mesma: minerais reduzidos reagem com água, produzem hidrogênio, e arqueias antigas convertem esse hidrogênio e o carbono inorgânico em metano e biomassa. Trocar o cenário da Terra de 4 bilhões de anos atrás pelo fundo de um oceano a 1,4 bilhão de quilômetros do Sol exige ajustar o pH, o ferro e os carbonatos, mas a estrutura do problema permanece.
Há um fio adicional que amarra este estudo às descobertas da Cassini. A detecção de fosfatos em 2023 só fazia sentido, segundo os modelos, porque a alta concentração de carbonato no oceano de Encélado impede que o fósforo seja sequestrado em minerais de cálcio, deixando-o dissolvido e disponível. O carbono abundante, portanto, favorece a habitabilidade por duas vias independentes: libera o fósforo e, como agora se vê, alimenta a fixação de carbono mesmo em pH extremo. E essa abundância não é um capricho local. Corpos que se formaram além da linha de neve do dióxido de carbono, a distância do Sol a partir da qual esse composto congela e passa a servir de material de construção planetária, tendem a nascer ricos em carbonatos. Encélado é um deles, mas não é o único.
A implicação se estende, assim, a toda a família de mundos oceânicos do Sistema Solar exterior. Europa, Ganimedes, Calisto e Titã tendem a compartilhar a mesma herança de voláteis congelados e, por extensão, a mesma tendência a oceanos carregados de carbono inorgânico. Se a alcalinidade decorrente dessa química fosse uma barreira intransponível para a vida baseada em metanogênese, boa parte desses oceanos estaria fora do jogo. Os resultados de Munique sugerem o contrário: o excesso de carbono, longe de ser um obstáculo, pode ser a própria razão pela qual esses ambientes merecem atenção. Nas palavras dos autores, os achados elevam o potencial de habitabilidade dos oceanos subterrâneos do Sistema Solar exterior num sentido geral.
Nada disso autoriza a dizer que há vida em Encélado, e o próprio artigo é cuidadoso nesse ponto. O experimento usou um organismo terrestre, moldado por bilhões de anos de evolução num planeta diferente, e o colocou num ambiente parcial: sem a pressão de dezenas de quilômetros de água e gelo, sem a crosta congelada, com ferro em concentração muito superior à esperada e durante apenas dois dias. A temperatura de 65 °C é plausível para as vizinhanças de uma fonte hidrotermal, mas o grosso do oceano é frio, perto de zero. O que o estudo demonstra é habitabilidade, a capacidade de um ambiente sustentar um metabolismo conhecido, e não habitação. A distância entre uma coisa e outra é exatamente o que as próximas missões terão de percorrer.
Essas missões já têm contorno. Nos Estados Unidos, o levantamento decenal de ciências planetárias publicado em 2022 recomendou como prioridade uma missão de grande porte chamada Enceladus Orbilander, que orbitaria a lua por cerca de um ano e meio antes de pousar perto das listras de tigre, para analisar diretamente o material da pluma com instrumentos capazes de identificar moléculas orgânicas complexas e, quem sabe, células. Na Europa, a ESA definiu Encélado como alvo de sua próxima missão de classe grande, dentro do programa Voyage 2050, com lançamento previsto para os anos 2040. Em ambos os casos, saber que organismos conseguem crescer em pH 11 muda o que se deve procurar e onde: não apenas sinais de metano, mas assinaturas de uma bioquímica adaptada à alcalinidade, como lipídios e padrões isotópicos específicos.
O próprio desenho do experimento oferece uma pista para essa busca. A marcação com carbono-13 funcionou em laboratório porque os cientistas controlavam a fonte de carbono, mas o princípio por trás dela, o de que organismos fracionam isótopos de maneira característica ao fixar carbono, vale para qualquer oceano. Estudos em ambientes alcalinos terrestres mostram que a metanogênese nessas condições produz variações isotópicas grandes, às vezes maiores do que as esperadas em pH neutro. Um espectrômetro de massa de alta resolução voando pela pluma, ou pousado na superfície, poderia medir a razão entre carbono-13 e carbono-12 no metano e no carbonato com precisão suficiente para testar se a assinatura é compatível com um metabolismo como o observado nos frascos de Munique.
Resta, inclusive, a pergunta que motivou tudo. O metano detectado na pluma de Encélado pode ter sido produzido por micróbios, mas também por reações puramente geológicas, como a redução abiótica do gás carbônico em sistemas serpentinizantes, ou pode ter sido herdado do material primordial que formou a lua. Os dados da Cassini não permitem distinguir essas origens. Modelos recentes estimaram que uma biosfera metanogênica no fundo do oceano, se existisse, teria biomassa pequena, mas compatível com a quantidade de metano observada. O novo estudo não resolve o enigma; ele retira do caminho um argumento que poderia ter encerrado o debate antes da hora, o de que o pH alto tornaria a metanogênese biológica impossível.
O tamanho do passo dado merece ser medido. Em 2018, quando pesquisadores de Viena mostraram que M. okinawensis produzia metano sob pressões e inibidores inspirados em Encélado, ficava a ressalva de que o teste fora feito num pH ácido, confortável para a arqueia e distante do oceano real. O estudo de 2026 responde a essa objeção de frente, levando o organismo a pH 11 e, mais do que isso, trocando o hidrogênio de cilindro por hidrogênio nascido da rocha. Cada uma dessas mudanças aproxima o experimento da lua. Juntas, elas transformam uma demonstração de princípio num ensaio de habitabilidade que leva a sério a química de Encélado tal como a Cassini a mediu.
No fim das 48 horas, o que restou nos frascos de Munique foi uma lama azul-esverdeada de brucita, iowaíta e carbonatos, pontilhada por células que brilham em azul quando iluminadas. Visto de longe, é um sedimento sem graça. Visto de perto, é a reconstituição mais fiel já tentada de um lugar que nenhum olho humano verá tão cedo: o fundo escuro de um oceano a 1,4 bilhão de quilômetros daqui, onde a água morna toca a rocha quebrada e, molécula por molécula, fabrica hidrogênio. Se algo vive lá, não precisará de luz, de oxigênio nem de um pH gentil. Precisará apenas de rocha, água e carbono, três coisas que Encélado tem de sobra, e de uma via metabólica mais velha do que qualquer continente. Os frascos mostraram que isso basta. Agora é a vez das sondas.