Revisão da Universidade de Pequim reúne décadas de experimentos e propõe o conceito de originabilidade: em vez de procurar sinais de vida, buscar as combinações de minerais que tornam a química da vida possível
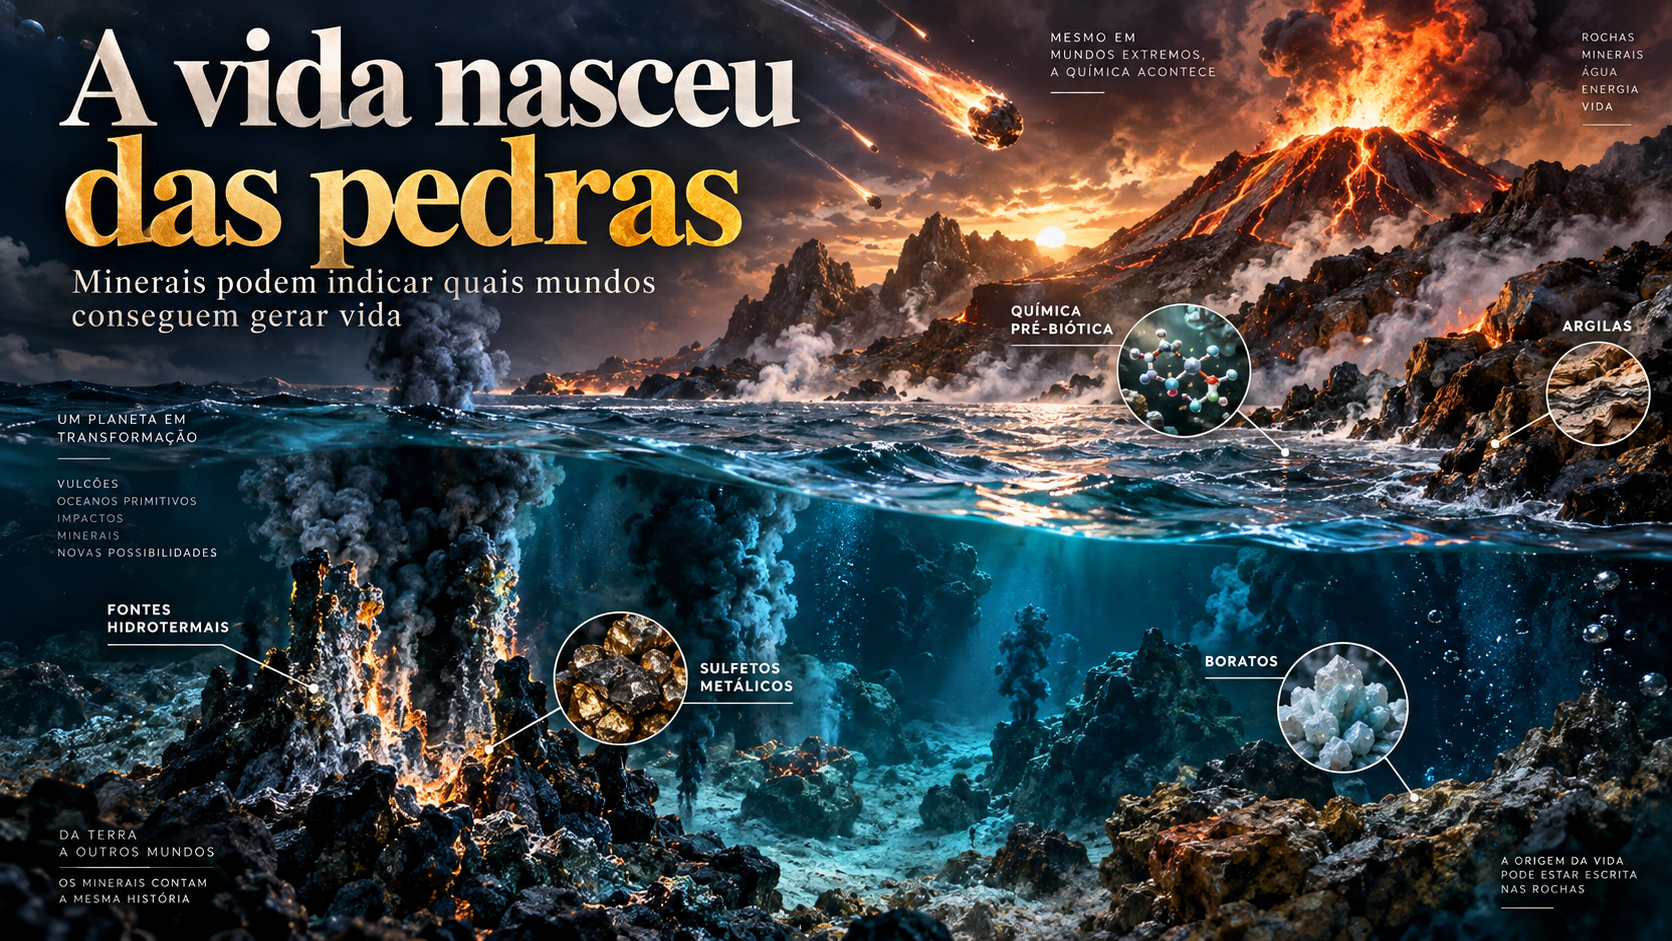
Há pouco mais de quatro bilhões de anos, a Terra não tinha nome, não tinha continentes estáveis e não tinha um único ser vivo. Tinha oceanos recém-condensados, vulcões sem trégua, uma atmosfera cuja composição os cientistas ainda discutem e um bombardeio de rochas vindas do espaço que estava longe de terminar. Tinha também algo que raramente aparece nas ilustrações desse mundo jovem: mais de 420 espécies minerais distintas, catalogadas pelos geólogos a partir do registro do Éon Hadeano, o intervalo anterior a 4,0 bilhões de anos atrás. Pirita, calcita, quartzo, argilas, sulfetos de ferro e de níquel, boratos. Esse inventário, muito mais rico do que se supunha há poucas décadas, é hoje o ponto de partida de uma pergunta que atravessa a astrobiologia inteira: e se as pedras, e não apenas a água, tiverem sido as verdadeiras parteiras da vida?

A pergunta ganhou uma resposta articulada em uma revisão publicada na Fundamental Research, periódico científico ligado à Fundação Nacional de Ciências Naturais da China, por Houze Lu, Yan Li e Dehai Liang, da Universidade de Pequim. O artigo, recebido em setembro de 2025 e disponível em acesso aberto desde 4 de julho de 2026, reúne décadas de experimentos de laboratório e de modelos teóricos para defender três ideias encadeadas. A primeira é que os minerais participaram ativamente de cada etapa da química que antecedeu a vida, da fabricação das moléculas mais simples à montagem das primeiras protocélulas. A segunda é que essa química não aconteceu em um único lugar, mas em uma rede de ambientes conectados pelo transporte de produtos ao longo do espaço e do tempo geológico. A terceira, e mais provocadora, é que as combinações de minerais presentes em um planeta podem servir de indicador de sua capacidade de gerar vida.
Há algo de simbólico na composição da equipe. Houze Lu, primeiro autor, é aluno de mestrado da Escola de Ciências da Terra e do Espaço da universidade. Yan Li, autora correspondente, é professora associada da mesma escola, pesquisa mineralogia ambiental e astrobiologia e é vice-presidente do grupo de trabalho de informática mineral da Associação Mineralógica Internacional, área que trata os minerais como dados, catalogando onde, quando e com quem cada espécie aparece ao longo da história de um planeta. Dehai Liang, do Colégio de Química e Engenharia Molecular, completa o trio. O texto agradece ainda a Robert Hazen, da Carnegie Institution for Science, o mineralogista que há duas décadas lidera a ideia de que a mineralogia terrestre coevoluiu com a vida, pelas sugestões que ajudaram a definir o conceito central da proposta.
Essa proposta muda o foco de um esforço que consome telescópios, sondas e orçamentos inteiros. A busca por vida fora da Terra se apoia, hoje, nas chamadas bioassinaturas: sinais produzidos direta ou indiretamente por organismos, como gases fora de equilíbrio em uma atmosfera ou padrões de reflexão da luz típicos de vegetação. São pistas valiosas, mas frágeis. Um gás pode se dissipar em poucos milhares de anos, pode ser produzido por processos sem nenhuma relação com seres vivos e pode se confundir com outros sinais no espectro de um planeta distante. Os minerais, ao contrário, resistem por bilhões de anos. Uma argila formada no fundo de um lago marciano há 3,5 bilhões de anos continua lá, à espera de um espectrômetro. Os autores argumentam que, antes de perguntar se um mundo abriga vida, vale perguntar se ele teve a geologia necessária para produzi-la.
A ideia de que a vida nasceu da química, e não de um sopro, tem quase um século de história formal. Na década de 1920, o bioquímico russo Alexander Oparin e o biólogo britânico J. B. S. Haldane propuseram, de modo independente, que moléculas orgânicas poderiam ter se formado a partir de precursores inorgânicos sob a atmosfera redutora da Terra primitiva, acumulando-se nos oceanos naquilo que ficou conhecido como sopa primordial. Em 1953, Stanley Miller deu corpo experimental à hipótese ao fazer descargas elétricas atravessarem uma mistura de gases que simulava essa atmosfera e obter aminoácidos, os tijolos das proteínas. Charles Darwin, em 1871, já havia especulado em carta ao amigo Joseph Hooker sobre um “pequeno lago morno” onde sais, luz, calor e eletricidade poderiam ter gerado um composto proteico. A sopa, o lago e a faísca foram, por muito tempo, as imagens dominantes.
Os minerais entraram nessa história aos poucos, à medida que os experimentos foram ficando mais sofisticados. Enxofre elementar, sulfetos e óxidos de metais de transição mostraram-se capazes de reduzir carbono e nitrogênio inorgânicos em reações fotoquímicas ou termoquímicas brandas, sustentando a produção contínua de pequenos blocos orgânicos. Argilas revelaram-se catalisadoras da polimerização de aminoácidos. Quando, no fim dos anos 1960, Leslie Orgel, Francis Crick e Carl Woese sugeriram que a primeira molécula capaz de se replicar teria sido o RNA, e não o DNA, hipótese batizada em 1986 por Walter Gilbert como RNA World, o mundo de RNA, as rochas voltaram a aparecer: boratos estabilizam a ribose, o açúcar que forma o esqueleto do RNA, e favorecem a montagem de moléculas precursoras. A cada nova etapa proposta para a origem da vida, alguma pedra se oferecia como ajudante.
O problema, apontam Lu, Li e Liang, é que a maior parte desses estudos olhou para uma reação de cada vez, em um ambiente de cada vez. A emergência da vida foi quase certamente um processo progressivo, em múltiplos estágios, com aumento contínuo de complexidade química: de átomos e moléculas simples para blocos de construção, destes para polímeros funcionais, e daí para as primeiras células. Demonstrar que um mineral acelera uma reação no laboratório é uma coisa. Mostrar que um conjunto de minerais, acoplado a condições de oxirredução, a fluidos de determinada composição, a fontes de energia e a ambientes que mudam com o tempo, poderia sustentar uma cascata encadeada de reações ao longo de milhões de anos é outra, bem mais difícil. É essa segunda tarefa que a revisão tenta organizar, etapa por etapa, mineral por mineral.
O primeiro degrau da escada é a fabricação de precursores orgânicos simples a partir de carbono inorgânico. A hipótese mais influente aqui é o iron-sulfur world, o mundo de ferro-enxofre, proposto pelo químico alemão Günter Wächtershäuser em 1988: sulfetos metálicos em sistemas hidrotermais reduziriam o carbono inorgânico a compostos como formiato, acetato e metanotiol. Em 1997, Claudia Huber e Wächtershäuser demonstraram que sulfetos de ferro e níquel coprecipitados, a temperaturas de até 100 °C e pressão ambiente, promovem a carbonilação do monóxido de carbono e do metanotiol para produzir ácido acético. O mecanismo proposto é organometálico e ocorre na superfície: sítios metálicos com coordenação incompleta, íons de níquel e ferro expostos na borda do cristal, agarram os reagentes e os ativam. A superfície do sulfeto funciona como uma bancada de trabalho com morsas embutidas, segurando as moléculas na posição certa para que reajam.
Em condições mais severas, a 250 °C e pressões entre 50 e 200 megapascais, o equivalente a centenas ou milhares de vezes a pressão atmosférica ao nível do mar, o sulfeto de ferro promove a formação de fases organometálicas a partir de monóxido de carbono e tióis de cadeia alquílica, abrindo caminho para intermediários mais complexos, entre eles o piruvato, molécula central do metabolismo de todas as células conhecidas. Há um detalhe que dá peso a esse cenário. Os aglomerados de ferro e enxofre que servem de centro catalítico em muitas proteínas modernas, as ferredoxinas, por exemplo, têm arquitetura parecida com a dos motivos metal-enxofre encontrados em minerais como a greigita. Para os defensores da hipótese, isso não é coincidência: a bioquímica teria herdado, e depois refinado, uma reatividade que já existia nas rochas antes de existir qualquer enzima.
Carbono, porém, é apenas metade do problema. Aminoácidos e nucleotídeos exigem nitrogênio em forma reduzida, como amônia ou íon amônio, e a origem desse nitrogênio é um quebra-cabeça à parte. Nos modelos antigos, uma atmosfera rica em metano, hidrogênio e amônia forneceria amônia e cianeto de hidrogênio diretamente. Modelos mais recentes favorecem uma atmosfera primitiva neutra ou levemente oxidante, na qual o nitrogênio existia sobretudo como N2, molécula inerte, presa por uma tripla ligação que poucos processos naturais conseguem romper. Nesse cenário, relâmpagos e reações fotoquímicas teriam produzido espécies oxidadas, como óxido nítrico, nitrato e nitrito, que precisariam ser reduzidas antes de entrar em qualquer síntese pré-biótica. De novo, os minerais aparecem como a solução mais plausível.
As evidências experimentais cobrem uma faixa ampla de temperaturas. Sulfeto de ferro de procedência comercial reduz nitrato e nitrito a amônio à temperatura ambiente, com mais eficiência em meio ácido. Em condições hidrotermais simuladas, a 300 °C e pressões de 50 a 500 megapascais, sulfetos naturais como pirrotita, calcopirita, millerita e calcocita convertem nitrato e nitrito a amônio; a pirrotita, em particular, reduziu todo o nitrato e 46% do nitrito disponíveis em apenas 90 minutos, em experimentos conduzidos por Jay Brandes, Robert Hazen e Hatten Yoder. Em condições bem mais amenas, abaixo de 120 °C, a pirita faz o mesmo trabalho, e o sulfeto de ferro opera em uma faixa larga de pH à temperatura ambiente, usando vacâncias de enxofre, lacunas na rede cristalina, como sítios reativos. A fixação de nitrogênio, portanto, não dependia de fumarolas escaldantes: podia ocorrer em ambientes mais frios e muito mais comuns.
Essa redução mineral do nitrogênio pode não ter se limitado à Terra. Ligas de ferro e níquel como a awaruíta, com cerca de 80% de níquel e 20% de ferro, e a tetrataenita, com proporções iguais dos dois metais, reduzem nitrito, nitrato e até o próprio N2 a amônio a 200 °C. Essas ligas são componentes típicos de meteoritos metálicos, o que sugere que o bombardeio do Hadeano, além de cavar crateras, entregou catalisadores capazes de converter nitrogênio em matéria-prima biológica. Cada fragmento de ferro meteorítico que caía em uma lagoa quente podia funcionar como um pequeno reator químico, fornecendo amônio às águas ao redor e ampliando a janela ambiental em que o nitrogênio reduzido podia se acumular.
Com precursores de carbono e de nitrogênio disponíveis, o degrau seguinte é a síntese dos monômeros essenciais: aminoácidos, bases nitrogenadas e açúcares. Para os aminoácidos, os sistemas hidrotermais continuam sendo o cenário preferido. Entre 80 e 120 °C, sulfetos e hidróxidos de níquel e ferro convertem monóxido de carbono e cianeto em alfa-cetoácidos, que em seguida recebem um grupo amina e se tornam aminoácidos. Fases de ferro parcialmente oxidadas, como o hidróxido ferroso, mostram atividade catalítica graças aos íons de ferro divalente em sua superfície, e os rendimentos crescem quando a proporção entre ferro divalente e trivalente é maior, quando a temperatura sobe e quando o pH é mais alto, como mostraram experimentos de Laura Barge com gradientes em sistemas de oxi-hidróxidos de ferro.
Os sulfetos não são os únicos fabricantes de aminoácidos. Argilas ricas em ferro, como a saponita, formada quando a água do mar reage com rochas do manto em um processo chamado serpentinização, promovem a síntese de aminoácidos aromáticos. Entre 100 e 150 °C, íons de ferro trivalente em sua superfície atuam como ácidos de Lewis, aceitadores de elétrons, e catalisam a alquilação e a aminação do piruvato até produzir triptofano e compostos relacionados. Essa rota foi documentada em 2018 pela equipe de Bénédicte Ménez, em rochas recuperadas das profundezas da litosfera oceânica, e sugere que fases minerais diversas ampliaram tanto a gama de ambientes quanto o repertório químico da síntese pré-biótica de aminoácidos.
As bases nitrogenadas, as letras do código genético, têm uma rota privilegiada a partir da formamida, molécula simples de carbono, oxigênio, nitrogênio e hidrogênio, abundante tanto no espaço quanto em ambientes geotérmicos. Aquecida a cerca de 160 °C na presença de sílica, alumina, carbonato de cálcio ou zeólita do tipo Y, a formamida se condensa em citosina e adenina. O dióxido de titânio catalisa a formação de adenina e timina abaixo dessa temperatura e, quando irradiado com luz ultravioleta em uma de suas faces cristalinas, produz as cinco bases canônicas por via fotocatalítica, como mostraram Sanjaya Senanayake e Hicham Idriss em 2006. A montmorilonita, argila que voltará a aparecer nesta história, promove a condensação térmica da formamida em uracila, citosina e adenina e ainda protege os produtos da degradação. Boratos, fosfatos, sulfetos de ferro e zircônia completam a lista, sustentando um modelo geral de formação de bases impulsionada pelo calor em ambientes hidrotermais.
Os açúcares são o elo mais frágil da cadeia. A ribose, a pentose que forma o esqueleto do RNA, pode ser produzida sem vida pela reação de formose, descrita por Alexander Butlerov em 1861, na qual o formaldeído se condensa em açúcares. O processo é um desastre de seletividade: gera misturas instáveis de dezenas de compostos que se degradam e escurecem, transformando-se em uma substância parecida com asfalto antes que a ribose tenha chance de se acumular. Os boratos impõem ordem a esse caos. Ao formar complexos com intermediários como o gliceraldeído e o glicolaldeído, direcionam a reação para a formação de pentoses, incluindo a ribose, e depois se ligam à forma cíclica do açúcar em complexos pouco reativos que impedem sua decomposição, como demonstraram Alonso Ricardo e colegas em 2004. O borato age como um corrimão químico: guia a reação pelo caminho certo e segura o produto no fim dele.
Se os boratos foram tão decisivos, é preciso saber se existiam na Terra hadeana, e aqui a resposta é incerta. Os minerais de boro mais antigos conhecidos são turmalinas de cerca de 3,8 bilhões de anos, encontradas no cinturão de Isua, no oeste da Groenlândia, uma das porções mais antigas de crosta preservada. Nada impede que boratos tenham existido antes de 4,0 bilhões de anos, mas o registro não os mostra. Vários mecanismos poderiam ter concentrado boro nos primeiros oceanos e lagos: o intemperismo de crosta continental granítica exposta, a lixiviação de fluidos hidrotermais a partir da crosta oceânica e um modelo de proto-arcos tectônicos, proposto para o intervalo entre 3,8 e 3,7 bilhões de anos, no qual fluidos profundos extrairiam boro de rochas ígneas félsicas. Se processos semelhantes já operavam no Hadeano, o enriquecimento necessário ao cenário da ribose torna-se geologicamente verossímil.
Parte dos monômeros, aliás, pode nem ter sido fabricada aqui. O meteorito Murchison, condrito carbonáceo que caiu na Austrália em 1969 e é um dos objetos mais primitivos já analisados, contém mais de 80 aminoácidos diferentes, além de bases nitrogenadas e ribose. Partículas de poeira interplanetária, que chovem continuamente sobre o planeta, teriam fornecido um fluxo constante de carbono, nitrogênio e fósforo. Como esses compostos se formaram nos corpos de origem ainda é debatido: há rotas fotoquímicas e térmicas a partir da hexametilenotetramina e há alteração aquosa no interior de planetesimais gelados. O que a revisão destaca é o papel protetor dos minerais nessa entrega: durante a viagem e a entrada na atmosfera, superfícies minerais blindam as moléculas orgânicas contra a radiação ultravioleta e o calor. Complexos entre moléculas e minerais, como os compostos cianocarbonílicos de ferro detectados em meteoritos, teriam garantido a chegada estável de cianeto, um precursor-chave, à superfície terrestre.
Dispor dos tijolos não basta: é preciso empilhá-los, e a transição de monômeros dispersos para polímeros funcionais é, para muitos pesquisadores, o passo mais difícil de toda a história. O primeiro obstáculo é a diluição. Em um oceano inteiro, moléculas raras quase nunca se encontram. As superfícies minerais resolvem esse problema adsorvendo aminoácidos, bases, nucleotídeos e açúcares por interações eletrostáticas e de coordenação, com eficiência que depende da composição da solução, da força iônica, do pH, da área superficial e da temperatura. Os aminoácidos, que carregam ao mesmo tempo um grupo ácido e um grupo amina, existem em solução como íons dipolares e se fixam aos minerais mesmo em condições neutras. A adsorção não apenas aumenta a densidade local de moléculas; ela também as pré-organiza em configurações favoráveis à reação, como convidados dispostos ao redor de uma mesa em vez de espalhados por um salão.
A formação de ligações peptídicas, que unem aminoácidos em cadeias, é termodinamicamente desfavorável em água diluída, porque cada ligação formada libera uma molécula de água e a reação inversa, a hidrólise, é a que a água favorece. Minerais comuns como pirita, calcita e rutilo catalisam tanto a formação quanto a quebra das ligações sem alterar o equilíbrio da reação, o que significa que o truque não está apenas no catalisador, mas em acoplá-lo a ciclos ambientais de secagem e reidratação. Sob aquecimento brando ou em regimes de wet-dry cycling, os ciclos de umedecimento e secagem típicos das margens de fontes termais, argilas como caulinita, bentonita e montmorilonita aceleram a oligomerização da glicina e produzem dipeptídeos e tripeptídeos mistos, resultado conhecido desde os experimentos de Noam Lahav e colaboradores, publicados em 1978.
Os sulfetos também sabem costurar aminoácidos. Em simulações de ambientes hidrotermais, sulfetos de ferro e níquel promovem a síntese de peptídeos a partir de glicina, fenilalanina e tirosina a 100 °C, na presença de monóxido de carbono e de sulfeto de hidrogênio ou metanotiol. Em condições extremas, perto de 500 kelvin e 20 megapascais, a pirita catalisa a oligomerização de aminoácidos quando há sulfeto de carbonila disponível, e cálculos teóricos indicam que sua superfície reduz a energia de ativação da condensação. O quadro que emerge é o de superfícies minerais criando bolsões físico-químicos locais nos quais a formação de ligações se torna competitiva com a hidrólise, algo que a água aberta jamais permitiria.
Há ainda uma assimetria a explicar. Os aminoácidos das proteínas são quase todos da forma L, e os açúcares dos ácidos nucleicos, da forma D, embora a química abiótica produza as duas versões espelhadas em quantidades iguais. Como essa simetria se rompeu é uma das perguntas abertas mais antigas do campo, e os minerais podem ter contribuído tanto para a escolha inicial quanto para a amplificação de pequenos desequilíbrios. Segundo a classificação proposta por Lee e colegas em 2022, a quiralidade mineral aparece de três modos: cristais com células unitárias intrinsecamente quirais, como o quartzo alfa; minerais aquirais com faces quirais, como a calcita e a hematita; e minerais com sítios quirais locais associados a defeitos estruturais, como as argilas. Em 2001, Robert Hazen e colegas mostraram que faces de calcita adsorvem seletivamente uma das formas do aspartato, abrindo a possibilidade de superfícies que concentram um enantiômero e favorecem polímeros homoquirais.
A seletividade dessa adsorção, contudo, costuma ser baixa, o que exige mecanismos adicionais de amplificação. A reação de Soai, descoberta por Kenso Soai em 1995, é um exemplo de autocatálise assimétrica capaz de amplificar um excesso quiral ínfimo até produtos quase enantiopuros, e cristais de quartzo, nas suas duas formas espelhadas, funcionam como gatilhos quirais desse processo. Trabalhos recentes mostram que a combinação de ciclos de umedecimento e secagem com adsorção em superfícies de calcita eleva de modo marcante o excesso enantiomérico de vários peptídeos. Se a Terra primitiva estava coberta de cristais quirais de todos os tipos, como a mineralogia do Hadeano sugere, a vida nascente teria encontrado por toda parte ambientes que empurravam sua química para um dos lados do espelho.
Para os polímeros genéticos, a estrela é a montmorilonita, argila que J. D. Bernal já apontava como suspeita em 1949 e que James Ferris transformou em objeto de décadas de experimentos. Sua estrutura é feita de camadas tetraédricas e octaédricas empilhadas, nas quais substituições isomórficas, alumínio no lugar de silício nas folhas tetraédricas e magnésio no lugar de alumínio nas octaédricas, criam déficits de carga e sítios reativos capazes de prender nucleotídeos. O resultado é que a argila concentra os monômeros, favorece a formação das ligações fosfodiéster que unem os nucleotídeos e acelera a oligomerização em relação à hidrólise por fatores de 100 a 1.000 em alguns sistemas. A superfície mineral não apenas acelera a reação; ela desloca a disputa entre caminhos concorrentes a favor do crescimento do polímero.
O comprimento das cadeias importa, porque oligômeros mais longos armazenam mais informação. Em solução aquosa a pH 8,0, monômeros ativados de adenosina e de citidina formam oligômeros de 10 a 20 unidades na presença da argila. Com estratégias de alimentação diária de novos monômeros ativados, Wenhua Huang e Ferris obtiveram cadeias de RNA com 40 a 50 unidades em condições pré-bioticamente relevantes, comprimento suficiente para que uma molécula comece a dobrar-se e a exibir alguma função catalítica. A montmorilonita ainda promove polimerização com alguma seletividade de sequência e de quiralidade, oferecendo uma rota plausível para os primeiros polímeros capazes de carregar informação genética.
Sintetizar moléculas frágeis sob o sol ultravioleta de uma Terra sem ozônio seria inútil se elas se desfizessem em horas, e aqui as argilas assumem o papel de abrigo molecular. Três propriedades explicam isso: grande área superficial para adsorção, poros pequenos que limitam a penetração da radiação e domínios entre camadas que isolam as moléculas do ambiente. A proteção foi demonstrada para aminoácidos, para ácidos nucleicos e até para uma ribozima em grampo, molécula de RNA com atividade catalítica, que sobreviveu à irradiação ultravioleta quando adsorvida à montmorilonita. O abrigo tem exceções: a presença de ferro divalente pode degradar matéria orgânica por reações foto-Fenton, nas quais o ferro e a luz geram radicais altamente oxidantes. O mesmo elemento que catalisa a síntese pode, em outro contexto, acelerar a destruição.
Se a passagem de monômeros a polímeros marca o surgimento da complexidade química, o passo seguinte é confiná-la. A compartimentalização é vista como pré-requisito da vida porque contém moléculas reativas, mantém a integridade química local e cria microambientes onde catálise, seleção e replicação ocorrem com mais eficiência, separando sistemas produtivos de subprodutos inúteis. Superfícies de pirita com carga positiva servem de ponto de acúmulo para lipídios anfifílicos e podem apoiar a formação de membranas. Em 2003, Martin Hanczyc, Shelly Fujikawa e Jack Szostak mostraram que a montmorilonita catalisa a formação de vesículas a partir de ácidos graxos e acaba encapsulada dentro delas junto com o RNA adsorvido em sua superfície: catalisador e compartimento nascem juntos. Caulinita, quartzo e pirita também direcionam moléculas anfifílicas a formar vesículas, sinal de que a montagem de membranas assistida por minerais era um fenômeno disseminado, e não exclusividade de uma única classe de rochas.
Nenhuma dessas reações acontece sem energia, e a revisão dedica atenção especial a como os minerais a converteram em forma utilizável. As etapas iniciais, como a redução de carbono e nitrogênio inorgânicos, exigem condições de alta energia que os sistemas hidrotermais podem fornecer, e os sulfetos se destacam por transformar calor, luz e desequilíbrios químicos em energia eletrônica, a moeda que os reagentes de fato gastam. O primeiro mecanismo é a conversão termoelétrica: nas chaminés de sulfeto das fumarolas submarinas, conhecidas como black smokers, as fumarolas negras, gradientes abruptos de temperatura entre o fluido quente e a água fria do mar geram fluxo de elétrons através da parede mineral, como em um termopar natural, impulsionando a síntese de precursores orgânicos contra barreiras termodinâmicas.
O segundo mecanismo é o efeito fotoelétrico em minerais semicondutores, abundantes nas fontes termais continentais. Quando um fóton com energia superior à banda proibida do cristal é absorvido, um elétron salta da banda de valência para a banda de condução, e o mineral adquire poder redutor suficiente para converter carbono inorgânico em moléculas orgânicas. A esfalerita, sulfeto de zinco, tem a borda de sua banda de condução em −1,37 volt em relação ao eletrodo normal de hidrogênio, a pH 7, valor mais negativo que o potencial de −0,61 volt necessário para reduzir dióxido de carbono a formiato; essa diferença é a força motriz da transferência fotoinduzida de elétrons. A alabandita, sulfeto de manganês, reduz bicarbonato a formiato, acetato e outros compostos por mecanismo análogo.
O enxofre nativo merece capítulo próprio: possui a maior energia de fotoelétron entre os semicondutores minerais conhecidos e consegue vencer até a barreira de −1,90 volt da redução de um único elétron do dióxido de carbono, o passo mais caro de toda a fotossíntese artificial. Uma vez gerados, os elétrons são conduzidos por sítios metálicos redox-ativos, como o ferro divalente, que servem ao mesmo tempo de ponto de adsorção do carbono inorgânico e de ponte para a transferência de carga até as moléculas adsorvidas. As rochas, nesse esquema, traduzem a energia disponível na natureza em equivalentes redutores, exatamente o que a vida nascente precisava e não tinha como fabricar sozinha.

Resolver a energia não resolve o lugar. Nenhum ambiente conhecido satisfaz ao mesmo tempo as exigências de todas as etapas da química pré-biótica. O lago morno de Darwin, a sopa primordial e os vários tipos de sistema hidrotermal já foram propostos como berço da vida, mas cada um oferece apenas um subconjunto das condições favoráveis. Reduzir carbono pede temperaturas altas e ambientes redutores; formar polímeros pede secagem e reidratação; montar membranas pede calma química e cargas superficiais adequadas. Temperatura, estado de oxirredução, hidratação, concentração de solutos, propriedades de interface e suprimento de energia variam de etapa para etapa, e o que favorece uma classe de reações frequentemente inviabiliza outra. Diante da complexidade do ambiente primitivo e das exigências até da protocélula mais simples, os autores consideram improvável que o caminho inteiro, das moléculas inorgânicas à primeira célula, tenha se desenrolado em um único cenário geológico.

As fumarolas de águas profundas são o cenário ideal para a primeira fase. Fornecem energia térmica e desequilíbrios redox que impulsionam a redução do carbono inorgânico e o alongamento das cadeias carbônicas, e seus sulfetos, com a conversão termoelétrica em gradientes térmicos íngremes, participam ativamente da fabricação de precursores e blocos de construção. Elas são, ao mesmo tempo, péssimos lugares para as etapas seguintes. Sistemas que ultrapassam 300 °C destroem macromoléculas e inibem as reações de condensação, porque a água quente hidrolisa com voracidade qualquer ligação que se forme. O que nasce nas chaminés precisa, portanto, sair delas para prosperar.
A polimerização e a montagem de polímeros funcionais exigem ambientes flutuantes, fora do equilíbrio, com gradientes térmicos e mudanças na atividade da água e na concentração de solutos. Ligações peptídicas e fosfodiéster precisam de desidratação, de modo que ambientes secos ou submetidos a ciclos de umedecimento e secagem concentram os reagentes e favorecem a condensação; argilas, sobretudo na presença de sais, catalisam a formação de peptídeos maiores nessas condições. Na replicação do RNA, oligômeros existentes servem de molde, e ciclos de aquecimento e resfriamento fazem o trabalho que hoje cabe a enzimas: a dupla fita se separa no lado quente, e a síntese dirigida pelo molde avança no lado frio. As fontes termais continentais, defendidas por Bruce Damer e David Deamer, reúnem calor, energia química, superfícies minerais e ciclos periódicos, tudo o que essa etapa pede. Sistemas hidrotermais alcalinos de águas rasas, estudados por Laura Barge e Roy Price, oferecem vantagens parecidas ao combinar gradientes de pH e de potencial redox com flutuações ambientais.

A compartimentalização, por sua vez, não requer injeção contínua de energia externa, mas é fortemente influenciada por força iônica, pH, temperatura e carga superficial. Minerais contribuem oferecendo interfaces que estabilizam agregados anfifílicos e estruturas porosas que confinam os reagentes: superfícies com carga positiva favorecem a estabilidade de vesículas de fosfolipídios, e poros minerais criam volumes confinados que elevam a taxa de encontro entre moléculas e protegem intermediários frágeis. As fumarolas hidrotermais alcalinas, com precipitados porosos ricos em sulfeto de ferro, são candidatas naturais: suas paredes funcionariam como compartimentos primitivos, enquanto gradientes de pH e de potencial redox através delas continuariam alimentando a química, como propuseram Nick Lane e William Martin ao defender a origem da bioenergética de membrana nesses ambientes.
É dessa constatação que nasce a tese central da revisão: a origem da vida não foi um evento localizado, mas o resultado de uma rede extensa de reações interligadas, uma cascata de etapas sucessivas distribuída pelo planeta. Na visão dos autores, a Terra primitiva funcionou como um sistema de reação em escala planetária, no qual minerais situados em ambientes diferentes atuaram como catalisadores, adsorventes, moldes e andaimes protetores para estágios distintos da síntese. Os produtos de uma etapa tinham de ser preservados, transportados e incorporados às reações seguintes em outro lugar. “Sucessivo”, nesse esquema, não significa imediato nem ininterrupto: algumas reações iniciais podem ter persistido por longos períodos ou produzido compostos estáveis o bastante para sobreviver em escala geológica, acumulando-se até serem levados a um ambiente favorável ao passo seguinte. Cada estágio criava a base material do próximo.
O acoplamento espacial dessas etapas dependeria de transporte em várias escalas. Localmente, fluidos hidrotermais e água do mar estabelecem convecção contínua em sedimentos porosos e chaminés, sustentando a entrada, a mistura e a recirculação de espécies químicas. Plumas hidrotermais dispersam compostos orgânicos dissolvidos e partículas minerais finas pelas águas ao redor, estendendo o alcance químico das fumarolas muito além de sua fonte. Em escala maior, a ressurgência oceânica levaria produtos formados nas profundezas a ambientes marinhos rasos, onde se acumulariam em sedimentos costeiros. Fluxos de fluidos geotérmicos através de fraturas na rocha, como demonstrou em 2024 a equipe de Thomas Matreux, concentram blocos de construção pré-bióticos e aumentam sua reatividade, conectando fontes termais separadas em um sistema microfluídico natural.
Há ainda duas vias de longo alcance. A atmosfera ofereceria uma delas: a desgaseificação vulcânica e a formação de aerossóis espalhariam espécies orgânicas reativas que a chuva devolveria à superfície e aos oceanos, distribuindo pelo planeta o que havia sido produzido em um único vale ou em uma única dorsal. Os impactos de asteroides e cometas ofereceriam a outra, ejetando e redistribuindo minerais e moléculas em escalas regionais a planetárias. Juntos, esses processos fornecem mecanismos verossímeis pelos quais cenários de reação espacialmente separados poderiam ter sido integrados em uma rede pré-biótica mais ampla, sem exigir que tudo acontecesse na mesma poça.
A continuidade no tempo tampouco precisava ser perfeita, desde que intermediários-chave durassem o suficiente para participar das etapas seguintes. Campos de fontes termais e fumarolas que ocorrem em enxames, como é comum em regiões vulcânicas, prolongariam a vida útil desses compostos ao oferecer refúgios sucessivos. Muitas sínteses iniciais podem ter sido intermitentes, com produtos acumulando-se em episódios favoráveis e persistindo por eras antes de serem transportados. Os minerais seriam decisivos nessa continuidade temporal por adsorver, estabilizar e liberar lentamente moléculas reativas, estendendo sua longevidade e reduzindo a degradação. Esse acoplamento no tempo permitiria que a seleção natural começasse a operar sobre conjuntos moleculares cada vez mais estáveis e interativos, muito antes de existir qualquer célula.
A rede, por sinal, não terminava na atmosfera. Cometas, meteoritos e poeira interplanetária entregaram precursores orgânicos e catalisadores e, em alguns cenários, ambientes inteiros de reação, na forma de sistemas hidrotermais gerados pelo calor de impactos, como os estudados por Gordon Osinski e colegas na Terra e em Marte. A panspermia, a hipótese de que a vida ou seus ingredientes viajam entre mundos, continua especulativa, mas achados como os supostos traços microbianos no meteorito marciano ALH84001, anunciados em 1996 e até hoje contestados, mantêm aberta a possibilidade de que os ingredientes da vida, e talvez algumas etapas de sua química, não estivessem confinados a um único planeta.

Ao reunir tudo isso em um único quadro, os autores enxergam um padrão. Os sulfetos metálicos, como os de ferro e níquel, dominam as primeiras etapas: redução de carbono e nitrogênio, síntese de aminoácidos, formação de ligações peptídicas. Suas superfícies oferecem sítios reativos de cátions metálicos que adsorvem, ativam e transformam moléculas pequenas, e o enxofre em baixo estado de oxidação fornece os elétrons que as reduções de alta energia exigem. Óxidos e hidróxidos metálicos contribuem sobretudo para a fabricação de blocos de construção, como aminoácidos e bases, em reações que pedem menos energia e são impulsionadas por elétrons deslocalizados nos poliedros de coordenação entre metal e oxigênio. As argilas, com a montmorilonita à frente, brilham nas etapas tardias: polimerização de peptídeos e oligonucleotídeos, montagem de vesículas e preservação de moléculas reativas, graças à estrutura em camadas que adsorve e concentra monômeros entre as folhas de silicato e os protege da radiação.

Os próprios autores advertem que esse quadro é um arcabouço de trabalho, não um inventário fechado. Muitas funções minerais na evolução química permanecem incertas, e a diversidade mineral do Hadeano era bem menor que a atual, com pouco mais de 420 espécies contra cerca de 6.000 reconhecidas hoje. Alguns elementos essenciais talvez não existissem como fases minerais principais, mas como constituintes menores de minerais mais abundantes: boa parte do fósforo da crosta oceânica primitiva, por exemplo, pode não ter estado na apatita, mas dispersa como traço em silicatos máficos como a olivina, como argumentam Craig Walton e colaboradores. Avaliar o potencial de um ambiente exige, portanto, considerar a diversidade geoquímica e a disponibilidade dos elementos, e não apenas a lista de minerais presentes.
A consequência prática aparece na proposta de indicadores de assembleia mineralógica. Como nenhum tipo de mineral parece participar de todas as etapas, a coocorrência de grupos complementares diz mais que a presença de qualquer espécie isolada. Um ambiente com sulfetos e óxidos metálicos teria potencial para formar precursores, blocos de construção e alguns polímeros funcionais. Um ambiente onde sulfetos, óxidos e argilas aparecem juntos, no mesmo local ou em locais espacialmente conectados, poderia sustentar uma faixa mais ampla de etapas, da síntese de pequenas moléculas à polimerização e à preservação. Um terreno que contivesse apenas argilas favoreceria os processos tardios, mas dificilmente sustentaria a síntese inicial dos precursores na ausência de fases redox-ativas. Os autores insistem que esses indicadores não provam que determinados minerais causaram a vida; são uma ferramenta teórica para avaliar ambientes geológicos que podem ter sido favoráveis à abiogênese, construída sobre experimentos isolados cujas sinergias e inibições mútuas ainda são mal compreendidas.
Para dar nome ao que esses indicadores medem, a revisão propõe um conceito. Habitabilidade, na definição consagrada, é a capacidade de um corpo planetário de sustentar a atividade ou a sobrevivência de organismos. Um ambiente habitável, porém, não tem necessariamente as condições para gerar vida do zero: as exigências da abiogênese são mais estreitas, mais restritivas e ainda mal delimitadas. Os autores introduzem então a originability, a originabilidade, definida como a capacidade de um ambiente de sustentar a emergência da vida a partir da química pré-biótica, e agradecem a Robert Hazen e a Dayong Jiang pelas sugestões que ajudaram a separar os dois conceitos. A distinção é a mesma que existe entre uma casa confortável e uma maternidade: a primeira abriga quem já nasceu; a segunda é onde se nasce. O arcabouço mineralógico avalia a segunda.
A comparação com as bioassinaturas tradicionais torna a proposta mais clara. Elas se dividem em gasosas, como oxigênio, metano e fosfina; de superfície, como a borda vermelha da vegetação, o red edge, o salto brusco de refletância que as plantas terrestres exibem na fronteira entre o visível e o infravermelho próximo; e temporais, ligadas a variações sazonais. Todas buscam sinais de atividade biológica presente ou passada, e todas sofrem de degradação e de falsos positivos: metano se forma em reações entre água e rocha, e análogos da borda vermelha surgem em minerais semicondutores. Sobreposição espectral, resolução insuficiente e limites de detecção produzem falsos negativos, e a própria atividade biológica varia, de modo que algumas assinaturas podem não se manter estáveis por longos intervalos.
Os indicadores mineralógicos não substituem esse arsenal; complementam-no. Feições minerais persistem por escalas de tempo planetárias e não pretendem detectar vida diretamente, mas identificar ambientes onde as reações pré-bióticas essenciais foram termodinâmica e cineticamente viáveis. Integrá-los à detecção de bioassinaturas ligaria o potencial biológico de um mundo ao seu contexto geológico. A pesquisa atual sobre exoplanetas habitáveis concentra-se em propriedades de escala planetária, como a composição atmosférica, a tectônica e as interações entre interior e superfície; o arcabouço mineralógico oferece uma lente mais localizada, na qual ocorrências minerais regionais ou locais podem apontar originabilidade mesmo em um planeta que, visto de longe, pareça medíocre.
A aplicação depende de conseguir identificar minerais além da Terra, sobretudo os pouco cristalinos, e isso ainda se faz por sensoriamento remoto e análise espectral. Em Marte, cada mineral tem assinaturas espectrais próprias, mas a confiança dos resultados é limitada por aerossóis atmosféricos, poeira que recobre as rochas, feições sobrepostas e os limites intrínsecos dos modelos. Há progresso: um estudo de 2026 de Hou e colaboradores aplicou um arcabouço de deep learning, aprendizado profundo, para quantificar óxidos e hidróxidos de manganês pouco cristalinos em Utopia Planitia, reconstruindo a evolução de um oceano do período Hesperiano que teria durado um milhão de anos. Para exoplanetas rochosos, o instrumento de infravermelho médio do Telescópio Espacial James Webb pode distinguir a diversidade geológica de superfícies, como indicou em 2025 a equipe de Emily First, e os conceitos de observatório LUVOIR e HabEx ampliariam ainda mais essa capacidade.
O arcabouço tem um laboratório natural ao alcance das sondas. Marte exibe argilas, sulfatos, óxidos de ferro e carbonatos mapeados desde a órbita pelos espectrômetros OMEGA, da Mars Express, e CRISM, da Mars Reconnaissance Orbiter, e visitados de perto pelos jipes Curiosity, na cratera Gale, e Perseverance, na cratera Jezero, cujas amostras lacradas aguardam uma missão de retorno ainda em definição. Ler esses terrenos com a lente da originabilidade significa perguntar não apenas se a água foi estável, mas se sulfetos, óxidos e argilas coexistiram em ambientes conectados, com fontes de energia e ciclos de secagem capazes de encadear as etapas. É uma pergunta diferente da que vem sendo feita, e ela pode ser respondida com instrumentos que já existem.
Durante décadas, a busca por vida fora da Terra olhou para o céu em busca de um sopro: um gás fora de lugar, um brilho de clorofila, um sinal de que algo respira. A revisão de Lu, Li e Liang convida a olhar para baixo, para as pedras, e a reconhecer nelas não o cenário passivo onde a vida apareceu, mas a maquinaria que a tornou possível. Se estiverem certos, a origem da vida não foi um relâmpago em um lago, mas um processo paciente, distribuído por fumarolas, fontes termais e praias, costurado por correntes, chuvas e impactos ao longo de milhões de anos, com minerais segurando cada molécula frágil até que a próxima etapa pudesse acontecer. A pergunta que resta para os telescópios deixa de ser apenas “há alguém lá fora?” e passa a ser “há, lá fora, um lugar onde alguém poderia ter nascido?”. A resposta, ao que tudo indica, está gravada em cristais que esperam há quatro bilhões de anos para serem lidos.