Corrente de tunelamento entre eletrodos atomicamente afiados distingue as formas L e D de dezenove aminoácidos sem luz polarizada nem reagentes; o sensor foi testado em extratos do Murchison e do deserto do Atacama e confrontado com a cromatografia de referência
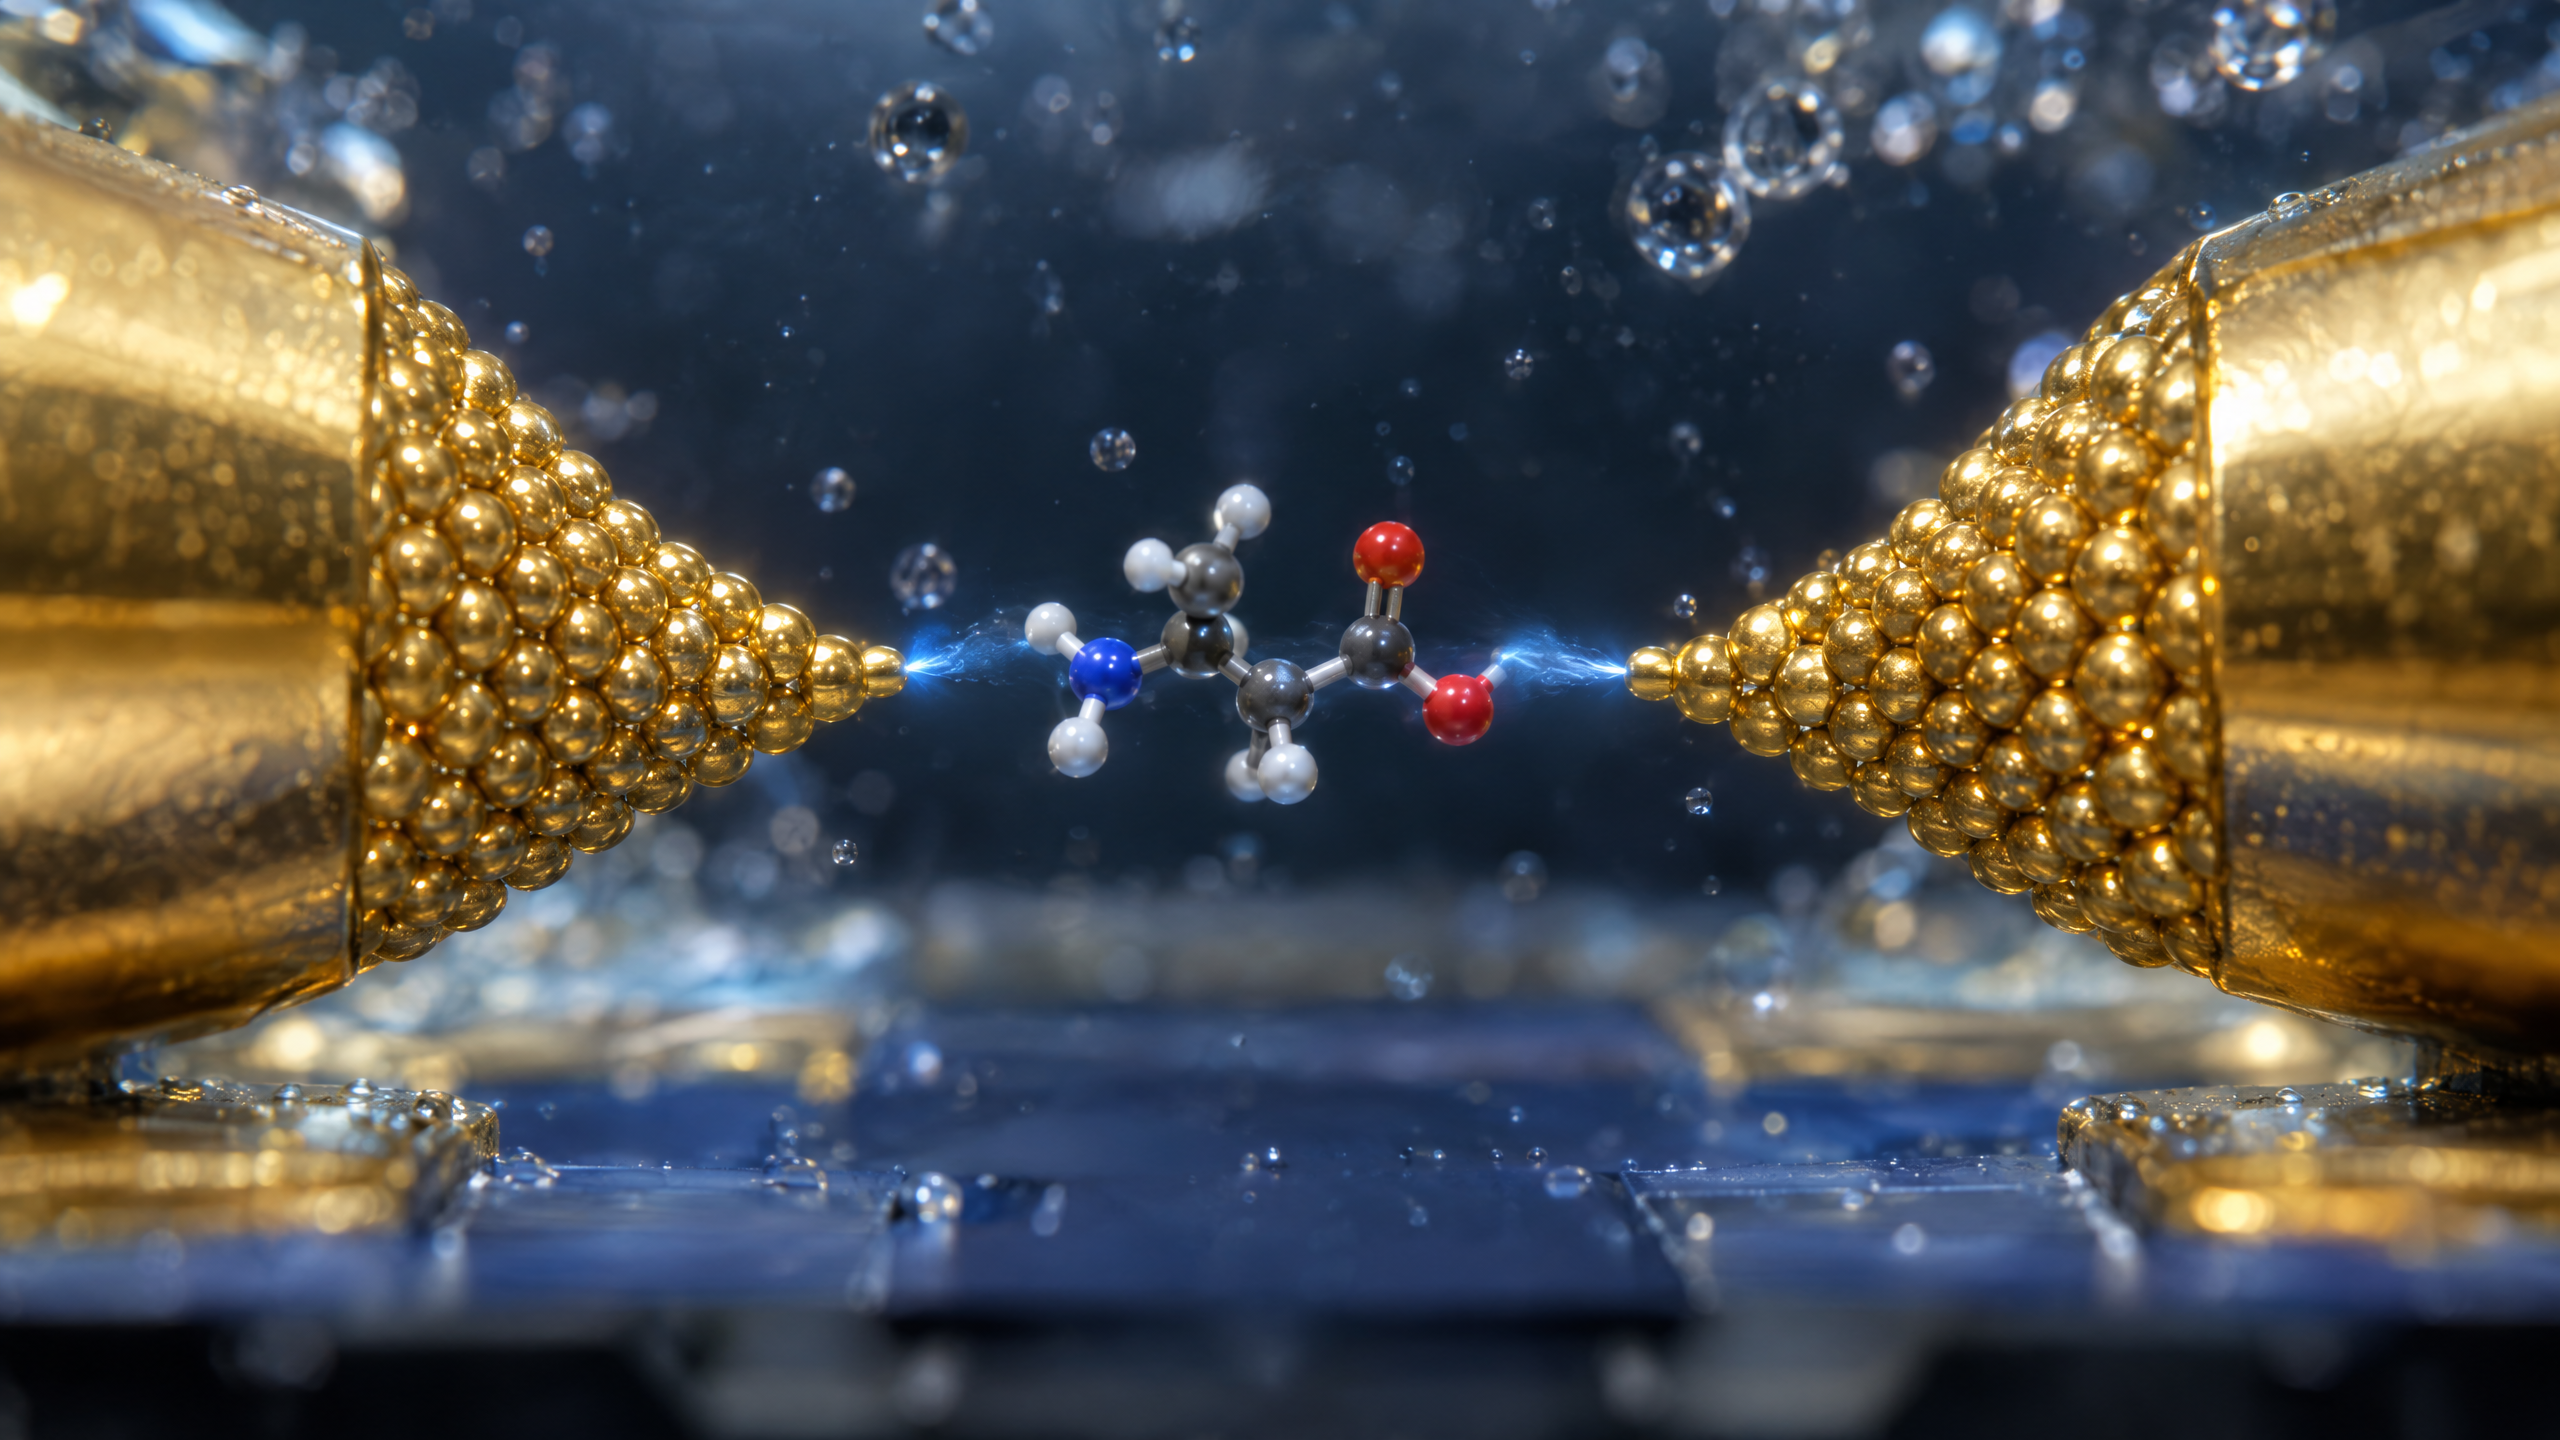
Imagine duas agulhas de ouro afiadas até que a ponta de cada uma termine em um único átomo. Aproxime-as até que o vão entre elas meça pouco mais de meio nanômetro, uma distância na qual os elétrons já não respeitam a barreira do vazio e atravessam o espaço por tunelamento quântico. Agora deixe uma única molécula de alanina, extraída de um fragmento do meteorito Murchison, vagar por esse corredor estreito. Por alguns milésimos de segundo, a corrente elétrica tremula, desenha um pico irregular e volta ao repouso. Dentro daquele tremor está escondida uma informação que a química convencional leva horas para obter: a molécula que acabou de passar é a versão original ou a sua imagem refletida no espelho?
A pergunta acaba de ganhar uma resposta elétrica. Em artigo publicado nesta segunda-feira, 5 de outubro de 2026, na revista Nature Communications, uma equipe liderada por Takahito Ohshiro e Masateru Taniguchi, do instituto SANKEN da Universidade de Osaka, em parceria com Christopher Carr, do Instituto de Tecnologia da Geórgia, e com pesquisadores do Centro de Voos Espaciais Goddard da NASA, do MIT e da Universidade de Chicago, mostra que a corrente de tunelamento que atravessa uma única molécula presa entre dois eletrodos de ouro distingue as formas L e D de dezenove aminoácidos, identifica qual aminoácido passou pela fenda e conta quantos de cada tipo existem na amostra. Sem luz polarizada, sem reagentes, sem moléculas de reconhecimento. O método foi testado em extratos do meteorito Murchison e de solos do deserto do Atacama, no Chile, e confrontado com a cromatografia líquida acoplada à espectrometria de massas, a técnica de referência nesse campo.
Para entender o que está em jogo, basta olhar para as próprias mãos. A esquerda e a direita são idênticas em tudo, dedo por dedo, mas não há rotação capaz de sobrepor uma à outra; só o espelho converte uma na outra. Moléculas podem ter a mesma propriedade. Quando um átomo de carbono se liga a quatro grupos químicos diferentes, o arranjo admite duas versões que são reflexos uma da outra, chamadas enantiômeros. Dezenove dos vinte aminoácidos que formam as proteínas são assim; a exceção é a glicina, pequena demais para ter uma “mão”. Os químicos batizaram as duas versões de L e D, das palavras latinas laevus e dexter, esquerda e direita, e a natureza fez uma escolha que ninguém sabe explicar.
Toda a vida terrestre constrói suas proteínas apenas com aminoácidos L, e seus açúcares, como a ribose do RNA e a desoxirribose do DNA, apenas na forma D. Essa unanimidade molecular, chamada homoquiralidade, contrasta com o que a química faz quando ninguém está vivo para intervir: reações abióticas produzem as duas formas em quantidades iguais, as chamadas misturas racêmicas. Daí a ideia, discutida desde os anos 1970, de usar o desequilíbrio entre L e D como uma bioassinatura. Se um instrumento encontrasse, no gelo de Encélado ou no regolito de Marte, aminoácidos com uma forte preferência por uma das mãos, teria diante de si uma pista séria de atividade biológica. Um limiar acima de 20% de excesso enantiomérico em vários aminoácidos já foi proposto na literatura como indicativo de vida.
O meteorito Murchison é o cenário clássico dessa discussão. Ele caiu em 28 de setembro de 1969, perto da cidade de mesmo nome no estado de Vitória, na Austrália, e os cerca de 100 quilos recuperados tornaram-se a mais estudada das rochas espaciais ricas em carbono. Nele foram identificados mais de setenta aminoácidos diferentes, a maioria inexistente na bioquímica terrestre, e dezenas de milhares de compostos orgânicos distintos. Análises antigas relataram excessos da forma L acima de 30% em aminoácidos como alanina, serina, leucina, ácido aspártico e glutamato. Hoje a comunidade atribui esses resultados, em grande parte, à contaminação por matéria orgânica terrestre que se infiltrou na rocha ao longo de décadas de manuseio. A lição foi dura: um sinal de vida mal medido vale menos do que nenhum sinal.
As missões de retorno de amostras encerraram parte dessa ambiguidade. A Hayabusa2, da agência japonesa JAXA, trouxe à Terra em dezembro de 2020 cerca de 5 gramas do asteroide Ryugu, e a OSIRIS-REx, da NASA, entregou em setembro de 2023 mais de 120 gramas de Bennu. Material colhido no espaço, lacrado e aberto em salas limpas, sem anos de contato com micróbios e dedos humanos. Nos dois casos, os aminoácidos encontrados apresentaram proporções entre as formas L e D compatíveis com misturas racêmicas dentro da incerteza experimental. O resultado reforça a leitura de que a química abiótica do Sistema Solar primitivo não tinha preferência por uma das mãos, e torna ainda mais valiosa qualquer técnica capaz de medir essa preferência com confiança em amostras minúsculas e sujas.
O problema é que enantiômeros são quimicamente gêmeos. Têm o mesmo ponto de fusão, a mesma solubilidade, a mesma reatividade diante de qualquer reagente que não seja, ele próprio, quiral. Desde que Louis Pasteur separou com uma pinça, em 1848, cristais de tartarato que eram imagens especulares uns dos outros, os químicos dispõem de duas estratégias para distingui-los. A primeira usa luz polarizada: as duas formas giram o plano de polarização em sentidos opostos. A segunda usa outra molécula quiral como sonda, seja uma coluna cromatográfica com recheio assimétrico, seja um reagente que se liga de modo diferente a cada mão e gera produtos separáveis. É assim que funciona a cromatografia de referência usada neste estudo, que marca os aminoácidos com o reagente OPA/NAC antes de separá-los e pesá-los no espectrômetro de massas.
Nenhuma dessas estratégias cabe com facilidade em uma sonda espacial. Instrumentos ópticos exigem lentes, fontes de luz e alinhamento preciso, e sofrem com vibração. Reagentes de derivatização têm prazo de validade, precisam de temperatura controlada e introduzem etapas em que o sinal pode se perder. Os requisitos de sensibilidade são brutais: estudos de planejamento para a procura de vida em Marte e nas luas geladas estimam que um detector precise alcançar concentrações da ordem de 1 nanomolar, bem abaixo da abundância de aminoácidos registrada em meteoritos, inclusive nos de origem marciana. Um sensor puramente elétrico, sem óptica e sem reagentes, com massa reduzida e tolerante às condições de voo, seria o candidato ideal para um conceito como o Europa Lander, da NASA, ou o Orbilander de Encélado.
É exatamente isso que o grupo de Osaka vem construindo desde o início da década passada. O coração do instrumento é a mechanically controllable break junction (MCBJ), a junção de ruptura mecanicamente controlável: um fio de ouro depositado sobre um filme de poliimida, por sua vez apoiado em um substrato flexível de silício. Um atuador piezoelétrico flexiona o substrato, o fio se estira e se rompe, e as duas pontas resultantes se tornam eletrodos. Ao repetir o rompimento e a reconexão várias vezes, as pontas vão se afinando até que o contato entre elas se reduza a um único átomo de ouro. Esse estado tem uma assinatura inconfundível: a condutância quantizada de 77,5 microsiemens, prevista pela mecânica quântica para um canal de um átomo. Quando esse último átomo é afastado, o contato se desfaz e surge o nanogap, a nanofenda pela qual as moléculas vão transitar.

A fenda não é um vazio inerte. Com uma tensão de apenas 0,1 volt entre os eletrodos, os elétrons atravessam o espaço por tunelamento, o mesmo fenômeno que faz funcionar o microscópio de tunelamento inventado em 1981. A corrente decai exponencialmente com a distância, o que a transforma em uma régua de precisão atômica: qualquer afastamento é percebido como uma queda de corrente, e um circuito de realimentação corrige o atuador piezoelétrico sempre que o desvio ultrapassa 0,0075 nanômetro. O resultado é um vão mantido entre 0,56 e 0,58 nanômetro, com flutuação de apenas 0,0052 nanômetro, por mais de cinco horas seguidas. Para dar escala, os comprimentos máximos dos aminoácidos tabelados pelos autores vão de cerca de meio nanômetro, no caso da glicina, a mais de um nanômetro nos maiores; a fenda é mais estreita do que a maioria das moléculas, que precisam se orientar para passar.

O chip inteiro é um produto de microfabricação de sala limpa. Sobre um substrato de silício de 0,3 milímetro, deposita-se um filme de poliimida de 5 micrômetros; litografia por feixe de elétrons desenha a linha metálica, que recebe 5 nanômetros de cromo e 200 nanômetros de ouro; uma camada de 300 nanômetros de dióxido de silício reduz o ruído elétrico e define um nanocanal por onde a solução escoa; e a poliimida logo abaixo do fio é corroída para criar o entalhe que facilita a ruptura. Uma tampa de polidimetilsiloxano, com microcanal, entrada e saída, conduz a amostra até o sensor. Silício, poliimida e óxido suportam mais de 300 graus Celsius, de modo que o dispositivo pode viajar sem refrigeração dentro de uma espaçonave cujo compartimento eletrônico chegue a 50 graus, como se prevê para um módulo de pouso em Europa.

Com o sensor pronto, o experimento é quase monótono na aparência. Soluções de cada aminoácido a 0,1 micromolar, em tampão fosfato com pH 7,4 para fixar o estado de carga das moléculas, são colocadas no chip. A corrente, registrada a 10 mil amostras por segundo, repousa em uma linha de base ruidosa de poucos picoamperes até que uma molécula se difunda para dentro da fenda. Nesse instante ela dispara em um pico abrupto e volta ao normal milissegundos depois. Cada pico é um evento de molécula única, caracterizado pela altura Ip, a corrente máxima, e pela duração td. Um algoritmo marca o início de um evento quando o sinal ultrapassa seis vezes o desvio padrão da linha de base e delimita suas bordas no ponto em que a corrente cruza um desvio padrão acima do repouso.

O triptofano foi a primeira cobaia, por um motivo físico: entre os vinte aminoácidos, é o que possui o maior sistema de elétrons π, aquela nuvem deslocalizada dos anéis aromáticos que transporta elétrons com facilidade, e por isso apresenta a maior condutância de molécula única. Os histogramas de altura de pico das formas L e D têm máximos em 35,7 e 36,9 picoamperes, e os de duração, em 3,55 e 3,44 milissegundos. Os números são próximos demais. Sobrepostas, as duas distribuições quase se confundem, e um observador que dispusesse apenas de altura e duração não teria como dizer qual mão passou pela fenda. Se a história terminasse aqui, não haveria artigo.
Antes de seguir, a equipe examinou como as propriedades físicas de cada aminoácido afetam o sinal. Ponto isoelétrico, comprimento e massa molecular foram confrontados com a duração dos eventos e com a frequência com que ocorrem, e emergiu uma correlação negativa clara: aminoácidos cujos eventos duram mais são detectados menos vezes. A interpretação proposta é um modelo em que a molécula primeiro se adsorve à superfície do eletrodo e depois se difunde ao longo dela até o sítio sensor; uma molécula que se move com dificuldade sobre o ouro demora mais na fenda e, justamente por isso, chega lá com menos frequência. A tabela do artigo registra extremos como a isoleucina L, com 443 eventos por minuto, e a prolina L, com apenas 37,5.

A calibração com triptofano estabeleceu os limites do sistema. Medindo por 15 minutos em cada concentração, com desvio padrão da frequência inferior a 0,27 evento por minuto e um branco de 2,1 eventos por minuto, a curva forneceu limite de detecção de 0,03 nanomolar e limite de quantificação de 0,2 nanomolar. Acima de 10 milimolar o sinal satura, porque as moléculas recobrem por completo a superfície dos eletrodos. Os autores fazem questão de qualificar o número: 0,03 nanomolar é o desempenho em solução limpa e controlada, muito aquém do que se obtém em uma matriz ambiental cheia de sais, ácidos orgânicos e fragmentos de peptídeos, onde o ruído de fundo e a rejeição de eventos ambíguos reduzem bastante a quantidade de moléculas efetivamente identificadas.

A diferença entre as duas mãos estava escondida na forma do pico, não em sua altura ou largura. Quando cada evento é normalizado no tempo, dividido em doze segmentos iguais e a corrente média de cada segmento é expressa como fração do máximo, as dezenas de milhares de eventos podem ser empilhadas em um mapa de densidade bidimensional. Nesses mapas, o triptofano L produz formas mais espalhadas do que o D, com regiões de maior probabilidade em posições diferentes. As variações são sutis, com desvios padrão da corrente entre 17,6 e 21,6 picoamperes para as formas L e entre 16,9 e 26,1 para as D, mas são sistemáticas. É o tipo de padrão que o olho humano não separa com segurança e que um classificador estatístico aprende sem esforço.

Cada evento foi então convertido em um vetor de quinze números: a altura do pico, a corrente média, a duração e os doze valores de forma. Para o triptofano, o software extraiu 25.143 formas de onda da solução L e 46.129 da solução D; as duas classes foram equilibradas por subamostragem, divididas em 80% para treinamento e 20% para teste, e um algoritmo de gradient boosting, o XGBoost, foi ajustado com validação cruzada de dez partes. O desempenho é expresso pelo F1-score, a média harmônica entre precisão e sensibilidade, que vale 0,5 para um palpite aleatório binário e 1,0 para um acerto perfeito. A classificação de eventos individuais de triptofano alcançou 0,827. Uma mão era reconhecida a partir de um único pico de corrente em mais de oito de cada dez vezes.

Validação cruzada tem um ponto fraco conhecido: treino e teste saem do mesmo lote de dados e podem compartilhar vícios do mesmo chip. Em uma missão real, o classificador seria treinado na Terra e embarcado em um sensor que mediria regolito marciano anos depois, em outro dispositivo. Para simular isso, a equipe treinou o modelo com 7.511 eventos D e 6.158 L obtidos em um chip e o testou em 5.970 eventos D e 4.889 L obtidos em outro. A estratégia de reserva completa, chamada hold-out, deu F1 de 0,816 no treino e 0,859 no teste, valores equivalentes aos da validação cruzada. O padrão que distingue as mãos não é um artefato de um eletrodo específico; sobrevive à troca de chip.

Por que o ouro enxerga a mão da molécula? As energias dos orbitais moleculares de fronteira, o HOMO e o LUMO que governam a condutância, são idênticas nos dois enantiômeros, e o nível de Fermi dos eletrodos é o mesmo. A diferença, portanto, não pode estar na molécula isolada; tem de nascer da interação transitória entre a molécula e a junção. A hipótese dos autores recorre a um resultado da ciência de superfícies: pontas metálicas atomicamente afiadas expõem facetas cristalinas de índices de Miller elevados, e tais facetas podem ser elas próprias quirais, como já se demonstrou em superfícies de cobre e em nanopartículas de ouro. A ponta de ouro funcionaria como uma mão sólida que aperta a molécula de modo ligeiramente diferente conforme ela seja esquerda ou direita.
Os pesquisadores admitem que esse mecanismo ainda não foi verificado. Estrutura local da junção, orientação da molécula, adsorção ou coordenação transitórias e interações eletrostáticas podem contribuir em proporções que os dados atuais não separam, e a geometria atômica das pontas só poderá ser conhecida se uma MCBJ for acoplada a um microscópio eletrônico de transmissão, projeto que o grupo deixa para o futuro. Um experimento indireto, contudo, aponta para a importância da geometria. Ao reduzir o vão de 0,56 para 0,54 nanômetro, a acurácia de discriminação aumentou para 14 dos 19 aminoácidos quirais; treonina e prolina se saíram melhor na fenda maior, e valina, metionina e isoleucina ficaram indiferentes. Um espaço mais apertado restringe as orientações possíveis e, ao que parece, acentua a diferença entre as mãos.
O ganho tem um preço. Com 0,54 nanômetro a frequência de eventos cai para 6,5 por minuto, um terço dos 18,4 por minuto observados entre 0,56 e 0,58, e acima de 0,58 ela despenca para 4,3. Menos moléculas conseguem entrar no corredor mais estreito. Por isso os autores adotaram 0,56 a 0,58 nanômetro como compromisso operacional. Correlações entre acurácia e tamanho molecular ficaram fracas, com coeficientes de 0,17 e 0,20 para comprimento e massa na fenda pequena, e praticamente nulos, de –0,02 e 0,00, na fenda maior. Moléculas maiores e mais pesadas parecem sofrer mais com a restrição de orientação do espaço apertado, mas o tamanho sozinho está longe de explicar por que a isoleucina é fácil e a glutamina é difícil.
Repetido para os outros dezoito aminoácidos quirais, o protocolo rendeu F1 entre 0,784, para a glutamina, e 0,974, para a isoleucina, com média de 0,876 e desvio padrão de 0,049. Esses valores se referem a um único pico de corrente. Uma medição de cinco minutos produz centenas de picos, e a estatística trabalha a favor de quem conta muitas vezes: se cada evento é classificado corretamente com probabilidade p, o veredito pela maioria entre n eventos segue a distribuição binomial. Com p igual a 0,9 e apenas 16 eventos, a chance de identificar corretamente a mão dominante da solução chega a 99,9%. Erros individuais se diluem, e a resposta coletiva converge para a verdade depressa, mesmo quando o acerto por evento parece modesto.
O teste seguinte foi mais ambicioso. Em vez de decidir entre duas mãos de um aminoácido conhecido, o classificador recebeu os 39 compostos de uma vez, as formas L e D de dezenove aminoácidos mais a glicina, e teve de dizer, a partir de um único evento, qual deles acabara de atravessar a fenda. O F1 obtido foi de 0,49. O número parece modesto até ser comparado com o acaso: com 39 classes, um palpite aleatório acerta uma vez em 39, ou 0,026. A matriz de confusão mostra uma diagonal bem marcada, com acertos que vão de cerca de 30% a mais de 60% conforme o composto, e as confusões concentradas entre moléculas parecidas. De novo, a soma de muitos eventos transforma um reconhecimento parcial em identificação confiável.

Identificar moléculas isoladas é a metade do caminho; a outra metade é contar. Como cada evento corresponde a uma molécula, classificar todos os eventos de uma solução equivale a fazer um censo molecular, e o censo fornece diretamente as proporções, inclusive a razão D/L. A primeira mistura testada continha D-tirosina, D-leucina, D-prolina e L-fenilalanina em partes iguais. Um classificador treinado com 3.800 formas de onda identificou as quatro espécies com F1 de 0,658, e a contagem resultou em 10.907, 6.195, 9.121 e 11.781 eventos, ou 28,7%, 16,3%, 24,0% e 31,0% do total, contra os 25% reais de cada uma. Os erros relativos foram de 14,8%, 34,8%, 4,0% e 24,0%, com a leucina claramente subcontada.
Uma segunda mistura equimolar, de D-tirosina, L-histidina, L-fenilalanina e L-serina, foi resolvida com F1 de 0,748 e proporções de 24,9%, 25,8%, 14,8% e 34,3%, de novo próximas das reais. O desafio subiu de nível com cinco espécies, incluindo as duas mãos da histidina, a 100 nanomolar de concentração total. Em proporções iguais, 1.238 eventos devolveram 1:1,0:0,8:0,8:1,0 para D-histidina, L-histidina, L-alanina, glutamina e L-serina, com erro dentro de 25%. Em proporções desiguais de 3:1:1,5:1,5:1,5, 786 eventos devolveram 3:1,0:0,6:0,9:1,4; a alanina ficou 56% abaixo do valor real, desvio que os autores atribuem ao número pequeno de eventos coletados nessa medição.

Amostras reais raramente contêm apenas aminoácidos. Material de origem biológica vem acompanhado de ácidos nucleicos, e por isso a equipe adicionou dois “contaminantes”, os nucleotídeos dGMP e dTMP, a uma mistura de glicina e das duas mãos de alanina e histidina. As sete espécies foram distinguidas com F1 de 0,761. A solução preparada na proporção 15:15:23:23:23:1:1 foi lida como 16:10:28:18:25:1:1, com erro inferior a 33% para cada componente, e os dois nucleotídeos, presentes a apenas 1% cada, foram contados corretamente. Os autores reconhecem que uma amostra de campo trará muito mais intrusos, de íons inorgânicos a pequenos peptídeos, e planejam incorporar medidas desses compostos ao treinamento, para que o classificador aprenda a reconhecê-los em vez de forçá-los em alguma categoria conhecida.

As discrepâncias entre as proporções reais e as contadas têm uma explicação física. O que leva uma molécula a se aproximar da fenda, atravessá-la e se afastar é o movimento térmico somado ao campo elétrico dos eletrodos, e esses fatores não agem igualmente sobre todos os aminoácidos. Diferenças de difusão, de afinidade pela superfície de ouro e de probabilidade de detecção fazem com que algumas espécies sejam vistas mais vezes do que outras para a mesma concentração. A tabela de frequências torna isso explícito: a histidina D gera quase 400 eventos por minuto, a isoleucina L mais de 440, e o ácido aspártico L apenas 40. Converter contagens em concentrações absolutas exigirá, no futuro, fatores de resposta calibrados para cada molécula.
Com o sistema validado em misturas sintéticas, a equipe foi atrás de amostras que importam para a astrobiologia. Do Museu Nacional de História Natural do Smithsonian veio um fragmento interior de 2 gramas do Murchison, sem a crosta de fusão que se forma na entrada atmosférica e que concentra contaminação. Do deserto do Atacama vieram solos coletados em fevereiro de 2022 em dois sítios, Diego de Almagro e Norte de Antofagasta, a profundidades de 5 a 10 centímetros. O Atacama é o lugar mais seco fora das regiões polares e serve há décadas como análogo de Marte para a NASA: seus solos hiperáridos, pobres em matéria orgânica e ricos em sais oxidantes, são o ambiente terrestre mais próximo do que um módulo de pouso encontraria no planeta vermelho.
A preparação segue o ritual da geoquímica orgânica, em que cada vidraria é aquecida a 500 graus Celsius durante a noite para eliminar qualquer resquício de carbono. Cerca de 1,2 grama de cada amostra foi moído e extraído em 2 mililitros de água ultrapura a 100 graus por 24 horas. Quase metade do extrato passou por hidrólise ácida em vapor de ácido clorídrico 6 molar a 150 graus por 3 horas, etapa que libera aminoácidos presos em peptídeos e precursores, e foi purificada em resina de troca catiônica. O concentrado final de 300 microlitros foi dividido: 10% para a cromatografia de referência, 65% para o sensor de nanofenda e o restante para análises futuras. Os solos do Atacama foram extraídos em triplicata; o meteorito, por economia de material, uma única vez.
O primeiro confronto entre as duas técnicas foi bruto: a abundância total de aminoácidos medida por cromatografia contra o número total de eventos de tunelamento registrados pelo sensor. O Murchison, de longe a amostra mais rica, gerou mais de 12 mil eventos em uma das extrações; o sítio Diego de Almagro ficou claramente acima do branco de processo, uma amostra vazia submetida a todo o protocolo sem material algum; e o sítio Norte de Antofagasta mal se destacou desse branco. Os autores advertem que o total de eventos não mede abundância, porque inclui tanto moléculas-alvo quanto sinais de fundo e compostos que o classificador nunca viu. Mesmo assim, a correlação sugere que o sensor responde à carga orgânica real das amostras.

A análise propriamente dita foi deliberadamente limitada. Em vez de tentar reconhecer qualquer coisa, a equipe definiu de antemão um painel de onze alvos, a glicina mais as formas D e L de alanina, valina, serina, ácido aspártico e ácido glutâmico, escolhidos com base em estudos anteriores do Atacama e na compatibilidade com a cromatografia. Para cada evento, o classificador calcula a probabilidade de pertencer a cada um dos onze alvos; só eventos cuja maior probabilidade atinge 0,5 são aceitos como identificações de alta confiança, e os demais vão para uma categoria de rejeitados. Essa categoria não é uma espécie química: é o conjunto do que o modelo não reconheceu com segurança, e o limiar foi aplicado sem ajuste a todas as amostras e ao branco.
O filtro de confiança fez o que se esperava dele. Foram aceitos 49,7% dos eventos do Murchison, 28,3% de Diego de Almagro, 25,4% de Norte de Antofagasta e apenas 6,8% do branco de processo, o que significa que 93,2% dos sinais gerados pelo protocolo vazio foram descartados como irreconhecíveis. A hierarquia faz sentido: a amostra com mais aminoácidos genuínos é a que mais produz eventos parecidos com os do treinamento, enquanto os solos pobres do Atacama carregam uma fração maior de sinais de fundo e de compostos estranhos ao painel. O branco, que em tese não deveria conter aminoácido nenhum, é majoritariamente ruído aos olhos do modelo, exatamente como deveria ser.

Nas identificações aceitas do Murchison, a glicina domina com 47,9%, seguida de alanina com 16,9%, ácido glutâmico com 12,0% e serina com 11,7%. A cromatografia encontrou glicina em 62,83%, alanina em 15,28% e ácido glutâmico em 16,44%, de modo que o sensor reproduziu a assinatura característica do meteorito, dominada por glicina, alanina e glutamato. As divergências aparecem na serina e na valina, que o sensor enxerga em 11,7% e 8,2% quando a cromatografia reporta 0,34% e 2,55%. A superestimativa provavelmente reflete eventos de outros compostos, ausentes do painel, que o classificador encaixou nas classes mais próximas; é justamente a limitação que um reconhecimento de conjunto aberto, capaz de dizer “não sei”, deverá corrigir.

Nos solos do Atacama o quadro é semelhante, com variações que dependem do composto. Em Norte de Antofagasta, glicina, alanina, serina e ácido aspártico ficaram em patamares comparáveis nas duas técnicas, a valina apareceu inflada no sensor e o ácido glutâmico, que a cromatografia mede em 4,02%, não sobreviveu ao filtro de confiança. Em Diego de Almagro, glicina e alanina coincidiram, valina, serina e ácido aspártico vieram mais altos no sensor e o ácido glutâmico voltou a desaparecer, apesar dos 11,16% medidos por cromatografia. O ácido glutâmico tem ponto isoelétrico de 3,22, o mais baixo do painel depois do aspártico, e carrega carga negativa no pH da medição; o artigo, porém, não determina a razão de sua ausência, e os autores a registram como uma das discrepâncias a investigar.

O teste decisivo, a razão D/L, só pôde ser comparado para alanina, valina e ácido aspártico no Murchison e em Diego de Almagro. A serina foi excluída porque sobraram poucos eventos de alta confiança para um cálculo confiável, e o ácido glutâmico porque não produziu razão alguma no solo chileno. O melhor acordo veio do ácido aspártico do meteorito: 0,71, com desvio de 0,41, pelo sensor, contra 0,91, com desvio de 0,04, pela cromatografia, valores compatíveis dentro da incerteza e consistentes com uma mistura quase racêmica. Para alanina e valina as duas técnicas divergiram, tanto no meteorito quanto no solo, e as barras de erro do sensor, derivadas de apenas três medições, são largas.

Os autores são explícitos sobre o que isso significa. As razões D/L do sensor devem ser lidas como estimativas de alta confiança dentro de um painel restrito, não como perfis quirais completos das amostras, e o acordo com a cromatografia depende do composto e da matriz. Três providências são apontadas como necessárias antes de qualquer uso quantitativo em campo: materiais de referência com matriz equivalente à das amostras, estatísticas de eventos muito maiores do que as obtidas aqui e algoritmos de open-set recognition, o reconhecimento de conjunto aberto que permite ao classificador recusar eventos que não se parecem com nada do treinamento. A cromatografia segue como padrão de referência em laboratório; o sensor é um candidato a instrumento de campo, não um substituto.

Ainda assim, o que o artigo estabelece é inédito em um aspecto preciso: a leitura elétrica direta da mão de uma molécula, uma por uma, sem óptica e sem sonda quiral. Nenhum espectrômetro de massas convencional faz isso em nível de molécula única. A técnica descende de uma linhagem que começou em 1996, quando se mostrou que moléculas de DNA atravessando um poro em uma membrana modulam a corrente iônica, ideia que deu origem ao sequenciamento por nanoporos, e que o grupo de Taniguchi redirecionou para o tunelamento eletrônico, detectando bases de DNA, modificações de RNA e, em 2014, modificações pós-traducionais em peptídeos individuais. A quiralidade era a fronteira seguinte, e o laboratório de Osaka, que trabalha com essas junções desde o início dos anos 2010, acaba de cruzá-la.
Há um bônus astrobiológico escondido na física da condutância. Aminoácidos abundantes em meteoritos tendem a ter intervalos HOMO-LUMO maiores do que os vinte aminoácidos escolhidos pela vida terrestre, e intervalos maiores significam condutância menor. Em uma nanofenda, portanto, os aminoácidos proteinogênicos produzem eventos de corrente mais altos do que seus primos meteoríticos. A combinação de abundância, condutância e excesso enantiomérico em uma única medição pode se tornar um indicador especialmente informativo de química prebiótica ou de vida, sobretudo onde a biomassa é escassa por falta de nutrientes ou de energia livre. Christopher Carr, coautor do estudo, lidera justamente o desenvolvimento do ELIE, um instrumento eletrônico de detecção de vida pensado para Encélado e Europa que se apoia nessa família de sensores.
Resta o problema de tirar os aminoácidos da rocha sem destruir a informação que se quer medir. A hidrólise ácida usada neste estudo, embora eficiente, pode racemizar aminoácidos, convertendo parte de uma mão na outra e apagando exatamente o sinal buscado. Alternativas como a extração com água subcrítica, testada em solos do Atacama há quase vinte anos, e a extração em fase sólida de regolito pulverizado são candidatas a um módulo de preparação embarcado. A boa notícia é a resiliência dos próprios alvos: aminoácidos persistem por bilhões de anos em ambientes frios e secos, como prova sua presença nos meteoritos primitivos, o que os torna um alvo durável tanto para a procura de química prebiótica quanto para a detecção de vida.
O percurso do artigo diz algo sobre a cautela que o tema exige. Submetido em 16 de fevereiro de 2023, o manuscrito só foi aceito em 5 de setembro de 2026, após mais de três anos e meio de revisão por pares, e sai agora sob licença Creative Commons, com os dados brutos de corrente, as matrizes de atributos e os rótulos de classe depositados no repositório Zenodo. A versão final carrega as marcas dessa revisão: a cada resultado animador corresponde um parágrafo que delimita o que ele não prova. O financiamento veio da Agência Japonesa de Ciência e Tecnologia, do Ministério da Educação do Japão e da NASA, um arranjo que espelha a dupla natureza do trabalho, metade nanotecnologia de ponta, metade preparação para missões planetárias.
A distância entre um experimento de bancada em Osaka e um sensor pousado em Europa continua enorme, e os próprios autores a medem com franqueza. Mas o caminho ficou mais curto do que era. Em 1976, as sondas Viking levaram a Marte cromatógrafos a gás acoplados a espectrômetros de massas, instrumentos pesados cujos resultados ambíguos alimentam debates até hoje. Meio século depois, um chip de silício com um fio de ouro rompido conta moléculas uma a uma, diz de que lado do espelho cada uma veio e cabe na palma da mão. Nenhum detector de vida vai se apoiar em um único sinal; a quiralidade será sempre lida junto com abundâncias, padrões de distribuição e contexto geológico. O que muda é que uma das peças mais difíceis desse quebra-cabeça ganhou um instrumento que não precisa de luz nem de reagentes para funcionar.
No fim, a ciência aqui é a de sempre: uma medida minúscula a serviço de uma pergunta antiga. Pasteur separou cristais com uma pinça e percebeu que a vida tinha preferência por um dos lados do espelho; um século e meio depois, duas pontas de ouro terminadas em átomos únicos repetem o gesto molécula por molécula, em água, no escuro, com um fio de corrente que mal chegaria a acender coisa alguma. Se algum dia um desses chips encontrar, no gelo de uma lua distante, uma população de aminoácidos que insiste em ser canhota, não será a corrente de tunelamento que responderá se há vida lá fora. Mas terá sido ela a primeira a notar que o espelho estava torto.